Влияние инсулина на обмен глюкозы
Ткани организма по чувствительности к инсулину делятся на два типа:
1. инсулинзависимые – соединительная, жировая, мышцы; в меньшей степени чувствительна к инсулину ткань печени;
2. инсулиннезависимые – нервная ткань, эритроциты, эпителий кишечника, почечные канальцы, семенники.
Метаболические эффекты инсулина разнообразны – регуляция обмена углеводов, липидов и белков. В норме инсулин выделяется в кровь после приема пищи и ускоряет анаболические процессы: синтез белков и веществ, являющихся резервом энергии (гликоген, липиды). Это единственный гормон, снижающий концентрацию глюкозы в крови.
Влияние инсулина на углеводный обмен:
1. увеличивает проницаемость клеточных мембран для глюкозы;
2. индуцирует синтез глюкокиназы, тем самым ускоряет фосфорилирование глюкозы в клетке;
3. повышает активность и количество ключевых ферментов гликолиза (фосфофруктокиназы, пируваткиназы)
4. стимулирует синтез гликогена за счет активации гликогенсинтазы и уменьшает распад гликогена;
5. ингибирует глюконеогенез, подавляя синтез ключевых ферментов глюконеогенеза;
6. повышает активность пентозофосфатного пути.
Общий результат стимуляции этих процессов – снижение концентрации глюкозы в крови. Около 50% глюкозы используется в процессе гликолиза, 30–40 % превращается в липиды и около 10 % накапливается в форме гликогена.
Влияние инсулина на метаболизм липидов:
1. ингибирует липолиз (распад триацилглицеролов) в жировой ткани и печени;
2. стимулирует синтез триацилглицеролов в жировой ткани;
3. активирует синтез жирных кислот;
4. в печени ингибирует синтез кетоновых тел.
Влияние инсулина на метаболизм белков:
1. стимулирует транспорт аминокислот в клетки мышц, печени;
2. активирует синтез белков в печени, мышцах, сердце и уменьшает их распад;
3. стимулирует пролиферацию и число клеток в культуре и, вероятно, может участвовать в регуляции роста in vivo.
Гипофункция поджелудочной железы
При недостаточной секреции инсулина развивается сахарный диабет. Выделяют два типа сахарного диабета: инсулинзависимый (тип I) и инсулиннезависимый (тип II).
Инсулинзависимый сахарный диабет (у 10% больных) – заболевание, вызываемое разрушением ?-клеток островков Лангерганса. Характеризуется абсолютным дефицитом инсулина.
Инсулиннезависимый сахарный диабет (у 90% больных) развивается чаще всего у тучных людей. Основная причина – снижение чувствительности рецепторов к инсулину, повышенная скорость катаболизма инсулина, нарушение регуляции секреции гормона. При этом уровень инсулина в крови – в норме. Факторы риска развития заболевания – генетическая предрасположенность, ожирение, гиподинамия, стресс.
Симптомы сахарного диабета: гипергликемия – повышение концентрации глюкозы в крови; глюкозурия – выведение глюкозы с мочой; кетонемия – повышение в крови концентрации кетоновых тел; кетонурия – выведение кетоновых тел с мочой; полиурия – возрастает суточный диурез (в среднем до 3–4 л).
Накопление кетоновых тел снижает буферную емкость крови, что приводит к ацидозу. Активируются катаболические процессы: распад белков, липидов, гликогена; повышается концентрация в крови аминокислот, жирных кислот, липопротеинов.
Гиперфункция поджелудочной железы
Инсулинома – опухоль ?-клеток островков Лангерганса, сопровождается повышенной выработкой инсулина, выраженной гипогликемией, судорогами, потерей сознания. При крайней степени гипогликемии может наступить смертельный исход. Устранить гиперинсулинизм можно введением глюкозы и гормонами, повышающими уровень глюкозы (глюкагон, адреналин).
При всем разнообразии форм и пищевых источников углеводов в кишечнике всасываются только гексозы, самое большое значение среди которых имеет глюкоза. Глюкоза, в сравнении с жирами и белками, является наиболее предпочтительным и доступным энергетическим веществом. Связано это с легкой усвояемостью, быстрым встраиванием в различные биохимические циклы обмена веществ. Несмотря на то что запасы глюкозы, представленные гликогеном мышц и печени в организме, значительно уступают запасам жиров и белков, именно гликоген печени способен при ферментативном расщеплении быть источником глюкозы, которая в первую очередь потребляется головным мозгом. Суммарно количество гликогена в
организме взрослого человека не превышает 500 г, треть которого приходится на печеночный, а остальное количество — на мышечный. Необходимо отметить, что именно наличие в печени фермента глю- козо-6-фосфатазы обеспечивает отщепление фосфатного остатка с образованием чистой глюкозы. В мышцах и жировой ткани подобного фермента нет, в силу этого конечным этапом гликогенолиза становится образование глюкозо-6-фосфата, который вступает в аэробный или анаэробный гликолиз с образованием молекулы воды и углекислого газа в первом случае, лактата — во втором. Инсулин ингибирует активность глюкозо-6-фосфатазы, в результате чего происходит торможение печеночной продукции глюкозы. Клетки печени свободно проницаемы для глюкозы, а скорость ее поступления в клетку зависит от скорости ее внутриклеточного фосфорилирования, которое осуществляется высокоспецифичной глюкокиназой.
Практически ни одна из клеток организма не содержит свободной глюкозы, а по мере поступления энергетического вещества метаболизирует ее по одному из возможных путей: это может быть простое окисление, синтез гликогена, синтез жирных кислот через ацетилКоА (рис. 5). В качестве альтернативных путей утилизации глюкозы нужно отметить пентозофосфатный и полиоловый пути обмена углеводов. В результате вступления глюкозы в пентозофосфатный цикл, который преимущественно активен в молочных железах, жиро-
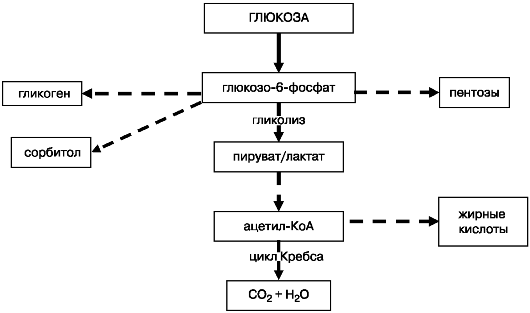 Рис. 5. Основные пути метаболизма глюкозы
вой ткани, надпочечниках, печени и эритроцитах, половых железах, происходит синтез промежуточных продуктов, необходимых для последующего образования жирных кислот, холестерина и половых стероидов. Синтезируемая D-рибоза используется для синтеза нуклеиновых кислот и нуклеотидов. Пентозный цикл обеспечивает процессы гидроксилирования, необходимые для синтеза биогенных аминов: катехоламинов, серотонина; стероидных гормонов коры надпочечников. Сорбитоловый, или полиоловый, путь активен в инсулинонезависимых тканях: эндотелии сосудов глаз и почек, нервной ткани. Образование сорбитола происходит и в норме, но значительно активируется во время хронической гипергликемии. Под воздействием фермента альдозоредуктазы происходит образование полигидроксильного спирта сорбита, который под действием сорбитдегидрогеназы преобразуется во фруктозу. Фруктоза и сорбит начинают активно накапливаться в упомянутых тканях в нефизиологичес-
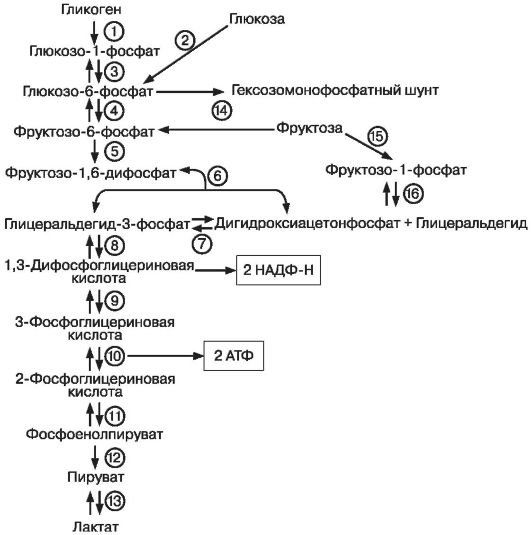 Рис. 6. Первый этап окисления глюкозы (цикл Эмбдена-Мейергофа)
ких количествах, вызывая деформацию клеток, их перерастяжение, сопровождающееся нарушением их функциональной активности. Являясь активными осмотическими веществами, фруктоза и сорбит привлекают на себя воду, вызывают выраженный гиперосмолярный отек и дальнейшие нарушения в заинтересованных тканях.
Центральным путем катаболизма глюкозы является гликолиз, или ее окисление, происходящее в три этапа:
1. Окисление глюкозы до пирувата (цикл Эмбдена-Меергофа).
2. Образование из пирувата ацетил-КоА.
3. Цикл трикарбоновых кислот (цикл Кребса).
Необходимо помнить, что в условиях аэробного гликолиза происходит полное разрушение питательных веществ до образования воды и углекислого газа. При отсутствии кислорода, т.е. в анаэробных условиях, клетка может синтезировать АТФ за счет гликолитического разрушения глюкозы с образованием лактата.
В обоих случаях в ходе гликолиза одна молекула глюкозы, состоящая из 6 атомов углерода, расщепляется ферментативным путем в десяти последовательных реакциях до 2 молекул пирувата, каждая из которых содержит по 3 атома углерода. Эта реакция приводит к образованию двух молекул АТФ и двух молекул НАДФ-Н, из которых в последующем в дыхательной цепи синтезируется 6 молекул АТФ, в сумме КПД первого этапа окисления глюкозы в присутствии кислорода составляет 8 молекул АТФ. В анаэробных условиях НАДФ-Н не поступает на дыхательную цепь внутренней мембраны митохондрий, следовательно, энергетическая составляющая аэробного окисления глюкозы снижается до двух молекул АТФ.
После образования пирувата в аэробных условиях происходит его дальнейшее декарбоксилирование до ацетил-КоА, в результате чего высвобождается молекула НАДФ-Н, дающая 6 молекул АТФ.
Ацетил-КоА входит в цикл трикарбоновых кислот (цикл Кребса), в результате образуется 24 молекулы АТФ (рис. 7). При прохождении в цикле трикарбоновых кислот одной молекулы пирувата происходит образование трех молекул воды и одной молекулы углекислого газа. Суммарно в процессе аэробного гликолиза вырабатывается 38 молекул АТФ.
Модуляторами интенсивности прохождения цикла Кребса являются уровень АДФ, ацетил-КоА, концентрация инсулина, скорость и активность прохождения гликолиза с образованием пирувата, уровень кислорода.
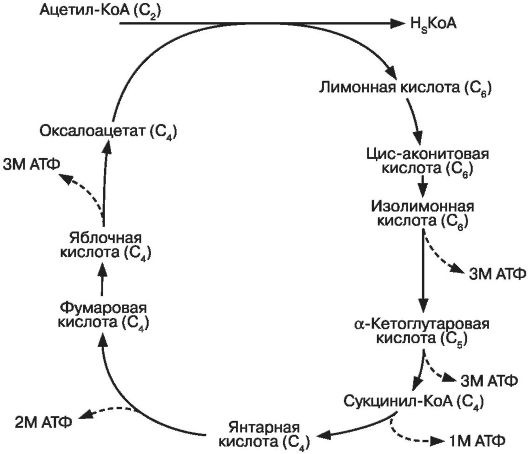 Рис. 7. Третий этап окисления глюкозы. Цикл трикарбоновых кислот
В условиях дефицита инсулина происходит торможение реакций окисления ацетил Ко-А, в силу чего происходит накопление недоокисленных продуктов: β-оксимасляной и ацетоуксусной кислот, а также участников окисления пирувата, что в конечном итоге вызывает развитие ацидоза и снижение рН крови. Важно помнить, что в процессе анаэробного пути превращения глюкозы образуется пируват, который может восстанавливаться до лактата. В этом случае возможно дальнейшее окисление лактата с образованием конечных продуктов метаболизма: углекислого газа и воды. А возможно вступление лактата в цикл Кори, где путем последовательных реакций, проходящих с затратой энергии, синтезируется эндогенная глюкоза. Этот процесс носит название ГЛЮКОНЕОГЕНЕЗА, и до 20% всей глюкозы в организме человека рециркулирует через цикл Кори, особенно активен этот процесс в печени и почках.
Глюкоза может быть получена не только алиментарным путем или в финале цикла Кори. Еще одним путем образования глюкозы может являться гликогенолиз — расщепление гликогена мышц ферментом
гексокиназой и гликогена печени — глюкокиназой. Процесс «отшнуровывания» молекул глюкозы от молекулы гликогена катализируется цАМФ, активность которой стимулируют адреналин и глюкагон, а тормозит инсулин, поддерживающий таким образом постоянство депо гликогена в печени.
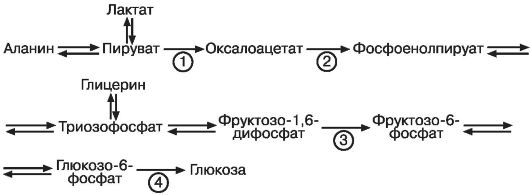 Рис. 8. Цикл Кори (глюконеогенез)
Ограниченность углеводных запасов в организме человека подчеркивает большое значение и важность жировых депо как источников энергетических субстратов, необходимых для поддержания энергетического гомеостаза. Преимущества жиров неоспоримы:
• при их окислении выделяется вдвое больше энергии, чем при окислении такого же количества белков и углеводов;
• жиры связывают гораздо меньше воды и потому являются наиболее компактной формой запасаемого организмом «топлива»;
• жировые депо служат изолирующим слоем, предохраняющим организм от избыточной потери тепла;
• триглицериды, на долю которых приходится до 80% всей запасенной энергии, позволяют человеку обходиться без пищи до нескольких недель;
• фосфолипиды являются основными компонентами клеточных мембран и предшественниками многих биологически активных соединений;
• холестерин служит предшественником многих жизненно важных соединений — желчных кислот, стероидных гормонов.
Несмотря на способность адипоцитов синтезировать холестерин, большинство из них утилизируют «экзогенный» холестерин, лишний раз подтверждая необходимость и важность умеренного употребления жиров с пищей. Поступающие с пищей жиры эмульгируются в кишечнике желчью до небольших капель, содержащих триглицериды, эфиры холестерина, фосфоглицериды, после чего начинают действовать специфические липазы, образуются жирные кислоты, глицерин, ди- и моноглицериды. Именно эти субстраты связываются с желчными кислотами и всасываются эпителиальными клетками тонкой кишки. В кишечнике происходит всасывание до 40% холестерина и порядка 85% триглицеридов, поступающих с пищей. Основные энергетические субстраты, образующиеся при распаде жиров — глицерин и жирные кислоты — встраиваются в окислительные реакции, окисляясь до воды и углекислого газа в присутствии кислорода или до лактата в анаэробных условиях. Глицерин в цикле Кребса дает одну молекулу АТФ в анаэробных условиях и 19 молекул АТФ в аэробных. Жирные кислоты окисляются до ацетил-КоА, метаболизм которой в цикле Кребса дает 24 молекулы АТФ.
В печени происходит спряжение углеводного и жирового путей обмена посредством ацетил-КоА. Так, в процессе окисления глюкозы и по мере накопления образовавшегося ацетил-КоА, не все соединение вступает в цикл Кребса, частично ацетил-КоА встраивается в цепь реакций, направленных на образование жирных кислот с различной длиной цепи, с последующим образованием триглицеридов при взаимодействии с глицерином. В свою очередь, липолиз и образование свободных жирных кислот способно давать в качестве энергетического субстрата ацетил-КоА и собственно глицерин, которые поступают в цикл трикарбоновых кислот (рис. 9). Сопряжение двух путей обмена получило название цикла Рендла. Рендл показал, что при избыточном поступлении в клетки свободных жирных кислот происходит увеличение содержания ацетил-КоА, которое сопровождается снижением активности прохождения цикла Кребса и увеличением накопления в клетках цитрата. Цитрат ингибирует активность фосфофруктокиназы — ключевого фермента в цикле Эмбдена-Меергофа, в результате чего снижается скорость фосфорилирования глюкозы и значительно замедляется утилизация глюкозы клетками. Следствием замедления транспорта и утилизации глюкозы становятся с одной стороны снижение интенсивности
синтеза гликогена в клетках, а с другой — повышение содержания глюкозы в периферической крови. Поскольку мышечная ткань в качестве пластического и энергетического материала может использовать ацетил-КоА «жирового» происхождения, встраивая его в цикл Кребса, циркулирующая глюкоза остается невостребованной. Имеются достоверные данные, подтверждающие наличие прямой корреляции между накоплением липидов в мышцах и формированием инсулинорезистентности.
Инсулин, будучи анаболическим гормоном, стимулирует синтез жирных кислот в печени и жировой ткани, тормозит липолиз и кетогенез, блокирует накопление в клетках триглицеридов и эфиров холестерина. В том случае когда происходит значительное снижение секреции инсулина, ткани организма начинают испытывать энергетический голод в связи с затруднением поглощения глюкозы инсулинозависимыми тканями, активируются процессы липолиза и последующего глюконеогенеза из ацетил-КоА.
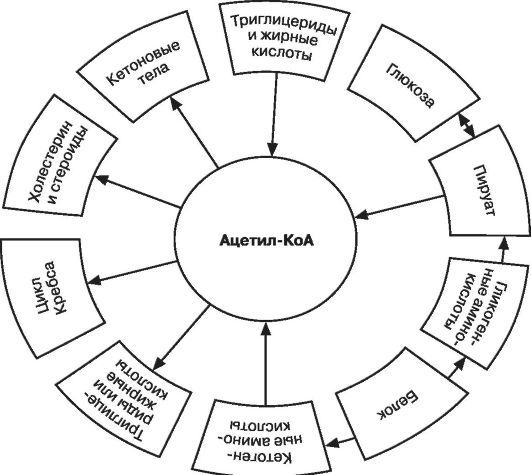 Рис. 9. Участие ацетил-КоА в метаболизме
Дефицит инсулина, приводящий к торможению окисления предшественников в цикле трикарбоновых кислот, накоплению большого количества потенциальных участников окисления в цикле Кребса, приводит к активации неполного окисления пирувата и ацетил-КоА до ацетоуксусной и β-оксимасляной кислот, массивному накоплению лактата, в результате чего развивается метаболический кетоацидотический ацидоз.
Влияние инсулина на белковый обмен так же актуально, как и в углеводном и жировом обменах. Белки являются не только необходимым компонентом любой из тканей организма, но и одним из главных пластических материалов, обеспечивающих рост и формирование организма. Инсулин обеспечивает положительный азотистый баланс в организме. Являясь анаболическим гормоном, он стимулирует не только активный транспорт аминокислот в клетки периферических тканей, но и непосредственный синтез белка на уровне транскрипции. Под влиянием инсулина, ускоряющего поглощение глюкозы, не только ускоряется синтез белка, но и замедляется его распад. Различают глюкогенные, кетогенные и смешанные аминокислоты. Кетогенная аминокислота — лейцин. Аланин, аргинин, аспарагиновая кислота и глицин, гистидин, пролин, метионин, серин, треонин, триптофан, а также валин являются источником для образования глюкозы (глюкогенные аминокислоты). Остальные аминокислоты могут быть использованы как для кетогенеза, так и для глюконеогенеза.
Рециркуляция обмена глюкозы и лактата между печенью и мышцами может проходить посредством глюкозо-аланинового цикла или челнока (рис. 10). Пируват, полученный в процессе гликолиза из глюкозы в мышцах, подвергается аминированию с образованием аланина, который с током крови поступает в печень, где происходит отщепление аминогруппы и дальнейший синтез глюкозы. Активное отщепление от аланина группы NH2 в процессе глюконеогенеза, осуществляемого в печени, может приводить к накоплению азотистых оснований в организме, развитию интоксикации и смещению рН. Подобные нарушения можно наблюдать у пациентов с манифестацией сахарного диабета типа 1 и лиц с декомпенсацией углеводного обмена.
Регуляторная роль инсулина в сфере белкового обмена очевидна и тесно связана с регуляцией метаболизма жиров и углеводов. Инсулин усиливает синтез белка, оказывает мощные анаболические эффекты на организм в целом и все органы и ткани в частности.
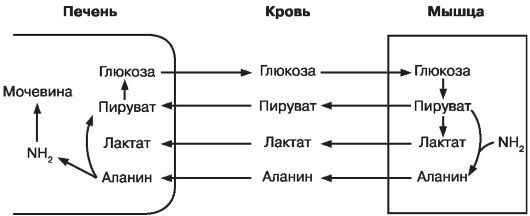 Рис. 10. Взаимосвязь цикла Кори и аланинового цикла
Хорошо известна роль инсулина в регуляции электролитного обмена. Особого внимания заслуживает влияние инсулина на обмен калия и натрия. Инсулин обладает выраженным антинатрийуретическим эффектом, что связано с влиянием гормона на почки. Инсулин снижает экскрецию натрия с мочой, не влияя при этом на скорость клубочковой фильтрации или секрецию альдостерона. Именно этот эффект лежит в основе отеков, появляющихся у части больных сахарным диабетом при назначении им инсулинотерапии. Как правило, подобные отеки проходят через несколько дней самостоятельно и не нуждаются в специфическом лечении.
- Инсулин обеспечивает проницаемость клеточных мембран для глюкозы путем соединения со специфическими рецепторами.
- Активирует внутриклеточные энзимные системы, обеспечивающие метаболизм глюкозы.
- Инсулин стимулирует гликогенсинтетазную систему, обеспечивающую синтез гликогена из глюкозы в печени.
- Подавляет гликогенолиз (расщепления гликогена в глюкозу).
- Подавляет глюконеогенез (синтез глюкозы из белков и жиров).
- Снижает концентрацию глюкозы в крови.
Влияние инсулина на жировой обмен
- Инсулин стимулирует липогенез.
- Оказывает антилиполитический эффект (внутри липоцитов тормозит аденилатциклазу, снижает цАМФ липоцитов, необходимого для процессов липолиза).
Недостаток инсулина вызывает усиление липолиза (расщепление триглицеридов до свободных жирных кислот (СЖК) в адипоцитах). Повышение количества СЖК является причиной жировой инфильтрации печени и увеличения ее размеров. Усиливается распад СЖК с образованием кетоновых тел.
Влияние инсулина на белковый обмен
Инсулин способствует синтезу белка в мышечной ткани. Недостаточность инсулина вызывает распад (катаболизм) мышечной ткани, накопление азотсодержащих продуктов (аминокислот) и стимулирует в печени глюконеогенез [3].
Дефицит инсулина увеличивает выброс контринсулярных гормонов, активацию гликогенолиза, глюконеогенеза. Все это ведет к гипергликемии, повышению осмолярности крови, обезвоживанию тканей, глюкозурии.
Стадия иммулогической дисрегуляции может длиться месяцы и годы, при этом могут выявляться антитела, являющиеся маркерами аутоиммунности к β-клеткам (ICA, IAA, GAD, IA-L) и генетические маркеры СД 1-го типа (предрасполагающих и протекторных гаплотипов HLA, которые по относительному риску могут отличаться у различных этнических групп).
Клинические формы СД
Латентный сахарный диабет
В этой стадии болезни нет клинических симптомов. Содержание глюкозы в крови натощак периодически может находиться от 5,6 до 6,9 ммоль/л, а в течение суток остается в пределах нормы, в моче глюкозы нет. Тогда ставится диагноз «нарушение глюкозы натощак (НГН)».
Если при проведении орального глюкозотолерантного теста (ОГТТ) (используется глюкоза в дозе 1,75 г/кг массы тела до максимальной дозы 75 г) уровень глюкозы в крови составляет > 7,8, но
Полифагия (повышенный апетит) обусловлена нарушением утилизации глюкозы клетками — последние голодают.
Похудание — симптом, характерный для СД 1-го типа, он так и называется — сахарный диабет «худых». Резкая потеря массы больного связана с неусвоением глюкозы клетками, усилением процессов липолиза и протеолиза в условиях дефицита инсулина, а также в связи с обезвоживанием организма.
Ранними признаками сахарного диабета могут быть кожный зуд в области наружных гениталий (у девочек — вульвит, у мальчиков — баланит).
В разгар заболевания кожа сухая, шелушится, тургор снижен. Печень часто увеличена в размере (жировая инфильтрация). Кислотно-основной состав (КОС) или рН крови 7,35-7,45 (норма), кетоновые тела в моче отсутствуют.
Фаза декомпенсации с кетоацидозом
Диабетический кетоацидоз развивается в результате поздней диагностики либо неправильного лечения уже диагностированного заболевания. Клиническими признаками этого состояния являются диабетический румянец на лице, усиливающаяся жажда, полиурия, похудание, снижение аппетита, тошнота, рвота, запах ацетона изо рта, боли в животе, появление головной боли. Важными лабораторными признаками этой фазы являются ацидоз и кетонурия.
Диабетическая кома
Наиболее тяжелое проявление кетоацидоза это развитие диабетической кетоацидотической комы. Из практических соображений последнюю подразделяют на кому I-III степени (I-II степень — прекоматозное состояние, III степень — собственно кома).
Для комы первой степени характерна сонливость, а также мышечная адинамия, выраженная жажда, тошнота, изредка рвота, рефлексы умеренно снижены, тахикардия, рН крови 7,25-7,15.
Для комы второй степени типичен сопор (спячка). Больного можно разбудить, он отвечает на простые вопросы и тут же засыпает. Дыхание шумное, глубокое, кетоацидотическое (Куссмауля), запах ацетона в выдыхаемом воздухе ощущается на расстоянии. Адинамия резко выражена, рефлексы угнетены. Тоны сердца приглушены, артериальное давление низкое, рН крови 7,15-7,0.
При коме III степени сознание отсутствует. Резкое обезвоживание, слизистые рта яркие сухие, язык обложен густым коричневым налетом, рвота цвета кофейной гущи. Кожа сухая с сероватым оттенком, шелушится, собирается в складки. Пульс нитевидный, тоны сердца глухие. Из-за резко выраженной дегидратации развивается олигоанурия, рН крови менее 7,0. При молочнокислом варианте диабетической комы могут преобладать резкие боли в области грудной клетки, сердца, мышцах, в животе. Отмечается быстрое появление и нарастание одышки, кетоз отсутствует или выражен слабо, гипергликемия умеренная (до 15-17 ммоль/л).
При сочетании кетоацидотической комы с гиперосмолярностьюхарактерны резкая дегидратация, возбуждение, гиперрефлексия, гипертермия, очаговая неврологическая симптоматика, патологические рефлексы, судороги, гипергликемия выше 30 ммоль/л. Возможно повышение натрия и мочевины в крови, кетоз и ацидоз.
Лабораторная диагностика
Главный лабораторный признак СД — гипергликемия. В норме содержание глюкозы в капиллярной крови натощак:
·у новорожденных 1,6-4,0 ммоль/л;
·у грудных детей 2,8-4,4 ммоль/л;
·у детей раннего и школьного возраста 3,3-5,0 ммоль/л.
. Критерии диагностики сахарного диабета (ISPAD, 2009) .
- Симптомы СД в сочетании со случайным выявлением концентрации глюкозы > 11,1 ммоль/л.
- Уровень глюкозы в плазме крови натощак > 7,0 ммоль/л.
- Уровень глюкозы через 2 часа после нагрузки > 11,1 ммоль/л [5].
У здорового человека глюкоза в моче отсутствует. Глюкозурия возникает при содержании глюкозы выше 8,88 ммоль/л.
Кетоновые тела (ацетоацетат, β-оксибутират и ацетон) образуются в печени из свободных жирных кислот. Увеличение их наблюдается при дефиците инсулина. Существуют тест-полоски для определения ацетоацетата в моче и уровня β-оксибутирата в крови (> 0,5 ммоль/л). В фазе декомпенсации СД 1-го типа без кетоацидоза отсутствуют ацетоновые тела и ацидоз.
Гликилированный гемоглобин. В крови глюкоза необратимо связывается с молекулой гемоглобина с образованием гликированного гемоглобина (общего НВА1 или его фракции «С» НВА1с), т. е. отражает состояние углеводного обмена за 3 месяца. Уровень НВА1 — 5-7,8% в норме, уровень минорной фракции (НВА1с) — 4-6%. При гипергликемии показатели гликированного гемоглобина высокие.
Иммунологические маркеры аутоиммунного инсулита: аутоантитела к антигенам β-клеток (ICA, IAA, GAD, IA-L) могут быть повышены. Содержание С-пептида в сыворотке крови низкое.
Если вы нашли ошибку, пожалуйста, выделите фрагмент текста и нажмите Ctrl+Enter.
