Реферат структура коллагена при сахарном диабете
Реферат на тему.doc
Интерферон g (ИФg) обеспечивает положительную обратную связь с макрофагами в отношении продукции , вследствие чего начавшийся с одной клетки иммунный ответ неaИЛ-1 и ФНО затухает, а амплифицируется.
Остается неясным вопрос о природе антигена, запускающего реакцию клеточного иммунитета, избирательно -клетки. Интересные результаты получены в исследованияхbнаправленную на на мышах линии NOD (non obesity diabetes) с высокой генетической предрасположенностью к ИЗСД. Из тканей этих мышей выделены клоны лимфоцитов, введение которых здоровым мышам вызывает диабет. Кроме того, такие лимфоциты оказались способными связывать инсулин, причем узнаваемой частью почти всегда -цепи, включающий 9 — 23 аминокислотные остатки (пептидbбыл фрагмент В). В этих лимфоцитах пептид В соединен с белками ГКГ класса II. Авторы допускают, что инсулин может быть первичным аутоантигеном при ИЗСД у мышей NOD, а возможно и у человека.
Аутоиммунный процесс в островках поджелудочной железы развивается в течение нескольких лет и приводит -клеток до клинического дебютаbк гибели основной массы (около 80%) болезни. В результате дефицита инсулина нарушается складирование энергоносителей и проявляется клиническая картина ИЗСД.
3. При дефиците инсулина нарушается синтез гликогена и жиров
При сахарном диабете инсулин-глюкагоновый индекс снижен. Это связано не только с уменьшением секреции инсулина, но и с увеличением секреции глюкагона (инсулин ингибирует секрецию глюкагона). В результате ослаблена стимуляция процессов складирования и усилена стимуляция мобилизации запасов, усилена настолько, что печень, мышцы, жировая ткань даже после приема пищи функционируют в режиме постабсорбтивного состояния. В этой драматической коллизии продукты переваривания, а также их метаболиты, вместо того, чтобы складироваться в форме гликогена и жиров, циркулируют в крови. Вероятно, в какой-то мере происходят и затратные циклические процессы типа одновременно протекающих гликолиза и глюконеогенеза, или синтеза и распада жиров и т.п..
Для всех форм сахарного диабета характерна сниженная толерантность к глюкозе, т.е. гиперглюкоземия после приема пищи или даже и натощак. При концентрации глюкозы в крови больше 180 мг/дл наступает глюкозурия. Повышена концентрация в крови липопротеинов (главным образом ЛОНП), свободных жирных кислот, кетоновых тел. В свою очередь гиперглюкоземия является основной причиной как острых, так и поздних осложнений диабета.
4. Коматозные состояния (острые осложнения) при диабете развиваются в результате нарушения обмена глюкозы и жиров
Коматозные состояния при сахарном диабете могут быть разного патогенеза. Различают три основные формы:
1. кетоацидотическая кома, с абсолютной инсулиновой недостаточностью
2. гиперосмолярная кома, с умеренной недостаточностью инсулина
3. лактатацидотическая кома, с выраженной гипоксией, сепсисом, сердечно-сосудистым шоком.
Кроме того, при инсулинотерапии сахарного диабета может быть гипогликемическая кома, связанная с передозировкой инсулина. Первые три состояния могут развиваться не только при сахарном диабете, но и при действии многих других факторов (токсических, инфекционных и др.).
Три основные формы коматозного состояния практически никогда не встречаются в чистом виде, однако обычно преобладают проявления какой-нибудь одной из форм (часто — гиперосмолярной), что и дает основания для выделения основных форм.
Первичной причиной кетоацидоза является инсулиновая недостаточность: в период комы С-пептид и иммунореактивный инсулин (ИРИ) в крови не определяются. Гипергликемия отмечается всегда, 20 — 30 ммоль/л, а иногда и более. Ацидоз при диабетической коме является следствием накопления органических кислот — кетоновых тел, а также лактата и пирувата. Концентрация кетоновых тел достигает 2 ммоль/дл (в 200 раз больше нормы); она повышается не только вследствие синтеза в печени, но и потому, что снижается экскреция кетоновых тел в связи с олигурией и анурией, которая часто бывает при коме. Снижение рН крови наблюдается всегда, до 7 и ниже (норма 7,4).
Развивается дегидратация, дефицит воды может быть до 10% от общей массы тела. Количество циркулирующей жидкости уменьшается на 25 — 30%, в результате снижается кровяное давление.
Кислородное и энергетическое голодание миокарда, уменьшение объема крови ведут к сердечно-сосудистой недостаточности. Могут быть повышение свертываемости крови, инфаркт миокарда, инфаркты паренхиматозных органов, инсульт, периферические тромбозы.
Диабетическая кома развивается медленно, в течение нескольких дней, но иногда может развиться за несколько часов. Появляются тошнота, рвота, черты лица заостряются, глаза западают, нарастает безучастность к окружающему, заторможенность, переходящая в глубокую кому (полностью выключенное сознание, отсутствие рефлексов, атония мышц и др.). В помещении, где находится больной, ощущается явственный запах ацетона. Артериальное давление снижено, почти всегда наблюдается олигурия или анурия.
Диабетическая кома требует немедленного лечения, которое включает следующие мероприятия:
1. ликвидация инсулиновой недостаточности путем введения инсулина в дозах, обеспечивающих постепенное снижение концентрации глюкозы в крови до уровня, близкого к нормальному
2. регидратацию организма путем введения жидкости
3. восстановление нормального солевого состава и рН жидкостей организма путем введения соответствующих солевых растворов
4. восстановление запасов гликогена в организме.
Проявления комы обычно ликвидируются в течение 2 — 3 дней при непрерывно продолжающемся лечении, причем лечение в первые несколько часов имеет решающее значение для спасения жизни больного.
До развития методов лечения диабета инсулином больные умирали вскоре после начала болезни от диабетической комы. Но и теперь кома наблюдается нередко. В частности, первое проявление болезни в 15 — 30% случаев сопровождается кетоацидозом и комой. Смертность от диабетической комы остается высокой — от 1 до 30%. Но основной причиной смерти больных диабетом в настоящее время являются поздние осложнения.
5. Гликирование белков — одна из главных причин поздних осложнений сахарного диабета
Поздние осложнения сахарного диабета связаны прежде всего с повреждением кровеносных сосудов (диабетические ангиопатии). Основной механизм повреждения тканей — гликирование (гликозилирование) белков, неферментативная реакция глюкозы со свободными аминогруппами белковой молекулы (Лиз, Арг, N-концевая аминокислота):
При этом образуется нестабильная альдиминовая группировка, которая может превращаться в ряд других, более стабильных соединений (“ранние продукты гликозилирования”). Понятно, что при этом функции белка могут быть нарушены в результате изменения заряда белковой молекулы, ее конформации или блокирования активного центра. Глюкозилирование — медленная реакция, в тканях здоровых людей обнаруживаются лишь небольшие количества гликозилированных белков. При гипергликемии реакция существенно ускоряется. Например, у больных диабетом в состоянии гипергликемии содержание одного из гликозилированных гемоглобинов — HBA1c — в течение 2 -3 недель увеличивается в 2 — 3 раза. Степень гликозилирования разных белков неодинакова; в основном она зависит от скорости обновления данного белка. В медленно обменивающихся белках накапливается больше модифицированных аминогрупп. Кроме того, в таких белках происходят дальнейшие изменения углеводных остатков — перестройки структуры, окислительные превращения, в результате которых образуются разнообразные “поздние продукты гликозилирования” (ППГ), часто коричневого цвета, флуоресцирующие, и некоторые из них обладают высокой реакционной активностью и способностью дополнительно повреждать белки, в т. ч. образовывать поперечные сшивки между молекулами белков. К медленно обменивающимся белкам относятся многие белки соединительно-тканных образований, межклеточного матрикса, базальных мембран. К тому же белки этих структур непосредственно контактируют с межклеточной жидкостью, в которой концентрация глюкозы такая же, как в крови (в клетках она обычно гораздо ниже в результате использования глюкозы в метаболических процессах). В этих структурах ППГ накапливается с возрастом, и накопление сильно ускоряется при сахарном диабете.
ППГ-белки могут гидролизоваться макрофагами (с участием ППГ-рецепторов) или межклеточными протеолитическими системами с образованием ППГ-пептидов, часто длиной около 30 аминокислотных остатков. ППГ-белки, и особенно образующиеся в результате их гидролиза ППГ-пептиды, попадают и в кровоток. Концентрация ППГ-пептидов в крови резко повышается при почечной недостаточности разного происхождения, в том числе при диабетической нефропатии. Это связано с тем, что элиминация ППГ-пептидов поисходит с участием почек: ППГ-пептиды фильтруются в клубочках, реабсорбируются клетками проксимальных канальцев и катаболизируются в лизосомах этих клеток.
В экспериментах на крысах показано, что введение ППГ-белков в кровь приводит к ковалентному связыванию этих белков с белками межклеточного матрикса во многих тканях и к появлению структурных и функциональных нарушений, сходных с теми, которые бывают при сахарном диабете.
ППГ проявляют многообразную биологическую активность: повышают проницаемость эндотелиальных клеток, соединяются с рецепторами макрофагов, эндотелиальных и мезангиальных клеток, активируют макрофаги к секреции цитокинов (рецепторным путем), подавляют образование NO и соответственно ингибируют расширение сосудов, усиливают окисление ЛНП. В крови больных диабетом обнаруживаются антитела к ППГ-пептидам.
6. Диабетические ангиопатии
Первичные проявления ангиопатий связаны с повреждением базальных мембран сосудов. Базальные мембраны (БМ) представляют собой пленки, на которых “растут” все клетки организма, кроме клеток соединительной ткани и крови: по одну сторону располагается клетка или слой клеток, а другой стороной БМ контактирует с фиброретикулярным межклеточным матриксом:
Базальные мембраны разных органов (А) и капилляров почечного клубочка (Б): а – люмен капилляры; б – полость Боуменовой капсулы; 1 – эндотелий; 2,3,4 – БМ клубочка (2 – lamina rara interna, 3 – lamina densa, 4 – lamina rara externa); 5 – подоцит, отростками контактирующий с БМ.
Эндотелий кровеносных сосудов, в том числе капилляров, тоже располагается на базальных мембранах. В отличие от всех прочих органов, в капиллярах почечного клубочка БМ трехслойна, а клетки располагаются по обе ее стороны.
В построении БМ участвуют коллагены, протеогликаны, неколлагеновые гликопротеины. Все компоненты БМ синтезируются прилегающими к ним клетками. Специальные функции выполняют интегрины — белки плазматической мембраны клеток, соединяющие клетку с БМ.
Коллаген IV типа — основной структурный белок базальных мембран. В геноме человека имеется шесть локусов, кодирующих шесть различающихся пептидных цепей, из которых строятся 1(IV)aтрехцепочечные молекулы коллагена IV. Чаще всего коллаген IV содержит цепи 2(IV).a1(IV)]2a2(IV) в составе гетеротримеров [aи Коллаген IV относится к сетеобразующим коллагенам. Взаимодействуя С-концевыми глобулярными доменами, молекулы образуют димеры, а при взаимодействии N-концевыми глобулярными доменами — тетрамеры.
Наряду с этими взаимодействиям конец в конец возможны и латеральные взаимодействия трехцепочечных спиральных доменов, в том числе с образованием суперспиралей. В конечном счете образуется сетевидная трехмерная структура с гексагональными ячейками размером 170 нм. Коллаген IV имеет также центры связывания с некоторыми белками клеточной мембраны, в том числе с интегринами.
Значительную часть массы БМ составляют протеогликаны. Эти молекулы содержат белковое ядро и ковалентно связанные с ним гликозамингликаны. В БМ в наибольших количествах содержатся гепарансульфат-протеогликаны (ГСПГ), и в значительно меньших — хондроитинсульфат- протеогликаны.
Гепарансульфат представляет собой неразветвленную цепь, построенную из глюкуроновой кислоты и глюкозамина, с последовательностью (ГлкА-ГлкN)n. Остаток глюкозамина может быть сульфирован по 2-й, 3-й и 6-й позициям. Молекулярная масса цепей обычно от 50 до 100 кДа. С одним белковым ядром ГСПГ обычно связано несколько цепей гепарансульфата. ГСПГ в БМ соединяется с коллагеном IV и ламинином определенными центрами белкового ядра и цепей гепарансульфата. Кроме того, ГСПГ разными способами может быть связан с поверхностью клеток, с участием как гликозамингликановой части, так и белкового ядра.
Ламинин — специфичный ,gbaдля БМ неколлагеновый гликопротеин. Молекула ламинина — тример имеет крестообразную форму, с тремя короткими ветвями и одной длинной:
Молекулы базальных мембран. А. Многомолекулярные структуры, образуемые коллагеном IV: 1 — тетрамер; 2 — димер; 3 — мономер. Б. Фибронектин. В. Основные гепарансульфат-протеогликаны БМК: 1 — перлекан; 2 — ГСПГ 200 кДа; 3 — ГСПГ 350 кДа (горизонтальные линии — пептидные цепи, вертикальные линии — гепарансульфатные цепи). Г. Ламинин.
Известны три разные . Варианты цепей могутg и две цепи b, три цепи aцепи комбинироваться по-разному при образовании тримерной молекулы. Пока обнаружено семь разных ламининов. Каждая из ветвей содержит глобулярные домены, которые имеют ряд центров свяэывания разных лигандов. Короткие ветви участвуют в образовании БМ путем взаимодейсв с другими молекулами ламинина, с коллагеном IV 1b1a(при участии еще одного белка — нидогена), а также с интегрином клеточной мембраны. Глобулярный домен длинной ветви участвует в межклеточной адгезии, взаимодействуя с разными интегринами и другими белками плазматической мембраны клеток. Длинная ветвь взаимодействует также с гепарансульфатными протеогликанами.
Интегрины представляют -димеры. Каждая цепьbaсобой трансмембранные гликопротеины, пересекает мембрану один раз. Обе цепи имеют большие внеклеточные домены (аминоконцевые), образующие центр связывания, комплементарный соответствующему лиганду — компоненту матрикса. Внутриклеточный домен взаимодействуют с актиновым цитоскелетом при посредстве ряда промежуточных белков. С местом взаимодействия интегринов с цитоскелетом соседствуют сигнальные белки, которые активируются, когда к внеклеточному домену интегрина присоединяется лиганд. Таким лигандом могут быть ламинины, коллаген IV, протеогликаны.
Введение
Коллаге́н — фибриллярный белок, составляющий основу соединительной ткани организма (сухожилие, кость, хрящ, дерма и т. п.) и обеспечивающий ее прочность и эластичность. Коллаген присутствует во всех организмах — от вирусов до многоклеточных. Коллагеновые структуры не обнаружены только у растений.
1. История исследования
Ученые десятилетиями не могли понять молекулярное строение коллагена. Первое доказательство того, что коллаген имеет постоянную структуру на молекулярном уровне, было представлено в середине 30-х годов прошлого века. С того времени много выдающихся ученых, включая Нобелевских лауреатов, таких как,Фрэнсис Крик, Лайнус Полинг, Александр Рич, Ада Йонат, Хелен Берман, Вилеайнур Рамачандран работали над строением мономера коллагена.
Несколько противоречащих друг другу моделей (несмотря на известную структуру каждой отдельной пептидной цепи) дали дорогу для создания троично-спиральной модели, объяснившей четвертичную структуру молекулы коллагена.
2. Свойства
Продуктом денатурации коллагена является желатин. Температура денатурации макромолекулы коллагена близка к температуре фибриллогенеза. Это свойство молекулы коллагена делает ее максимально чувствительной к мутационным заменам.
3. Структура
Молекула коллагена представляет собой правозакрученную спираль из трёх α-цепей. Такое образование известно под названием тропоколлаген [1] . Один виток спирали α-цепи содержит три аминокислотных остатка. Молекулярная масса коллагена около 300 кДа, длина 300 нм, толщина 1,5 нм.
Для первичной структуры белка характерно высокое содержание глицина, низкое содержание серосодержащих аминокислот и отсутствие триптофана. Коллаген относится к тем немногим белкам животного происхождения, которые содержат остатки нестандартных аминокислот: около 21 % от общего числа остатков приходится на 3-гидроксипролин, 4-гидроксипролин и 5-гидроксилизин [2] . Каждая из α-цепей состоит из триад аминокислот. В триадах третья аминокислота всегда глицин, вторая — пролин или лизин, первая — любая другая аминокислота, кроме трёх перечисленных [1] .
Коллаген существует в нескольких формах. Основная структура всех типов коллагена является схожей. Коллагеновые волокна образуются путем агрегации микрофибрилл, имеют розовый цвет при окраске гематоксилином и эозином и голубой или зеленый при различных треххромных окрасках, при импрегнации серебром окрашиваются в буро-желтый цвет.
4. Фибриллярная структура
Тропоколлаген (структурные единицы коллагена) спонтанно объединяются, прикрепляясь друг к другу смещенными на определенное расстояние концами, образуя в межклеточном веществе более крупные структуры. В фибриллярных коллагенах молекулы смещены относительно друг друга примерно на 67нм (единица, которая обозначается буквой «D» и меняется в зависимости от состояния гидратации вещества). В целом каждый D -период содержит четыре целых и часть пятой молекулы коллагена. Величина 300 нм, поделенная на 67 нм (300:67) не дают целого числа и длина молекулы коллагена разделена на непостоянные по величине отрезки D. Следовательно, в разрезе каждого повтора D -периода микрофибриллы есть часть, состоящая из пяти молекул называемая «перекрытие», и часть, состоящая из четырех молекул — «разрыв». Тропоколлагены к тому же скомпонованы в шестиугольную или псевдошестиугольную (в поперечном разрезе) конструкцию, в каждой области «перекрытия» и «разрыва».
Внутри тропоколлагенов существует ковалентная связь между цепями, а также некоторое непостоянное количество данных связей между самими тропоколагеновыми спиралями, образующими хорошо организованные структуры (например, фибриллы). Более толстые пучки фибрилл формируются с помощью белков нескольких других классов, включая другие типы коллагенов, гликопротеины, протеогликаны, использующихся для формирования различных типов тканей из разных комбинаций одних и тех же основных белков. Нерастворимость коллагена была препятствием к изучению мономера коллагена, до того момента как было обнаружено, что возможно извлечь тропоколлаген молодого животного, поскольку он еще не образовал сильных связей с другими субъединицами фибриллы. Тем не менее, усовершествование микроскопов и рентгеновских аппаратов облегчили исследования, появлялось все больше подробных изображений структуры молекулы коллагена. Эти поздние открытия очень важны для лучшего понимания того, как структура коллагена влияет на связи между клетками и межклеточным веществом, как ткани меняются во время роста и регенерации, как они меняются во время эмбрионального развития и при патологии.
Коллагеновая фибрилла — это полукристаллическая структурная единица коллагена. Коллагеновые волокна — это пучки фибрилл.
5. Использование
5.1. Пищевая промышленность
С точки зрения питания, коллаген и желатин являются белками низкого качества, так как они не содержат всех незаменимых аминокислот, необходимых человеку — это неполноценные белки. Производители основанных на коллагене пищевых добавок утверждают, что их продукты могут улучшить качество кожи и ногтей, а также здоровье суставов.
Относительно дешевые, часто предлагаемые сегодня на рынке под видом источника свободных аминокислот гидролизаты коллагена не всегда способны удовлетворить потребности человека в свободных аминокислотах, так как эти продукты не содержат готовые к усвоению аминокислоты, а является лишь частично “переваренными” экстрактами суставных тканей млекопитающих, птиц или обитателей моря. Например, гидролизаты коллагена почти полностью лишены аминокислоты L-Глютамина, не отличающейся стойкостью к термическому воздействию и долгому хранению сырья, большая часть Глютамина и разрушается уже на первых этапах хранения и переработки сырья, имеющийся небольшой остаток практически полностью распадается во время термической экстракции хрящевой ткани.
Наиболее качественными источником аминокислот являют препараты, содержащие так называемые “свободные аминокислоты”. Так как именно свободные аминокислоты являются практически готовыми к усвоению, организму принимающего человека не нужно тратить время, пищеварительные ферменты и энергию на их переваривание. Они способны в кратчайшие сроки поступить в кровь, и будучи доставленными ею к местам, нуждающимся в дополнительном синтезе коллагена, тут же включаются в его формирование. [источник не указан 132 дня]
5.2. Косметические средства
Коллаген входит в состав косметических средств для «омолаживания» кожи.
5.3. Научные исследования
В 2005 году учёным удалось выделить коллаген из сохранившихся мягких тканей тиранозавра [3] и использовать его химический состав как ещё одно доказательство родства динозавров с современными птицами [4] .
5.4. Научные исследования в медицине
Синтез коллагена — сложный ферментативный многостадийный процесс, который должен быть обеспечен достаточным количеством витаминов и минеральных элементов. Синтез протекает в фибробласте и ряд стадий вне фибробласта. Важный момент в синтезе — реакции гидроксилирования, которые открывают путь дальнейшим модификациям, необходимым для созревания коллагена. Катализируют реакции гидроксилирования специфические ферменты. Так, образование 4-оксипролина катализирует пролингидроксилаза, в активном центре которой находится железо. Фермент активен в том случае, если железо находится в двухвалентной форме, что обеспечивается аскорбиновой кислотой (витамин С). Дефицит аскорбиновой кислоты нарушает процесс гидроксилирования, что влияет на дальнейшие стадии синтеза коллагена- гликозилирование, отщепление N- и С-концевых пептидов и др. В результате синтезируется аномальный коллаген, более рыхлый. Эти изменения лежат в основе развития цинги.
6. Типы коллагена
В настоящее время описано 28 типов коллагена, которые кодируются более чем 40 генами. Они отличаются друг от друга по аминокислотной последовательности, а также по степени модификации — интенсивности гидроксилирования или гликозилирования. Общим для всех коллагенов является существование 1 или более доменов, содержащих тройную спираль и присутствие их во внеклеточном матриксе. Более 90 % всего коллагена высших организмов приходится на коллагены I, II,III и IV типов.
| Разновидности коллагена | Типы |
|---|---|
| Фибриллярные коллагены | I, II, III, V, XI, XXIV, XXVII |
| Фибрилл-ассоциированные коллагены (FACIT) | IX, XII, XIV, XVI, XIX, XX, XXI, XXII |
| Коллагены, формирующие филаменты- бусины (beaded filament forming) | VI |
| Сетеобразующие коллагены | IV, VIII, X |
| Коллаген, формирующий якорные фибриллы | VII |
| Трансмембранные коллагены | XIII, XVII, XXIII, XXV/CLAC-P |
| Другие коллагены | XXVIII, XV, XVIII |
Кроме белков коллагенов существует множество белков, содержащих в своей структуре домен с тройной коллагеновой спиралью [5] [6] . И, тем не менее, они не позиционируются как коллагены, а только как «коллагено-подобные». К большой группе коллагено-подобных белков относятся подкомпонент C1q комплемента, C1q подобный фактор, адипонектин, колектины и фиколины, концевая структура ацетилхолинестаразы, три макрофаговых рецептора, эктодисплазин и EMILIN. Эти белки, так же как и коллагены, играют структурную и регуляторную роль.
Коллаген первого типа, самый архетипичный, является тримерным белком, собирающимся в тройные спирали без разрывов, самособирающимся в фибриллы и обладающим наибольшей механической прочностью. Между тем, все остальные коллагены отличаются от него в одном или нескольких аспектах. Некоторые коллагены имеют разрывы в тройной спирали и не обязательно собираются в фибриллы.
| Тип коллагена | Гены | Молекулы | Органы | Ассоциированные болезни |
|---|---|---|---|---|
| I | COL1A1 COL1A2 | α1(I)2α2(I), α1(I)3 | Повсеместно в мягких и твердых тканях, в коже, костях | Синдром Элерса-Данлоса, остеогенез, ревматизм, синдром Марфана, дисплазии |
| II | COL2A1 | α1(II)3 + см тип XI | Хрящи, стекловидное тело, межпозвоночные диски | Коллагенопатия II и XI типа, синдром Стиклера, ахондрогенез |
| III | COL3A1 | α1(III)3 | Мягкие ткани и полые органы | Синдром Элерса-Данлоса, фибромышечная дисплазия, аневризма аорты |
| IV | COL4A1 COL4A2 COL4A3 COL4A4 COL4A5 COL4A6 | α1(IV)2α2(IV), другие непонятно | Базальные мембраны | Синдром Альпорта, синдроме Гудпасчера |
| V | COL5A1 COL5A2 COL5A3 | α1(V)2α2(V), α1(V)α2(V)α3(V) + см тип XI | Мягкие ткани, плацента, сосуды, хорион | Синдром Элерса-Данлоса |
| VI | COL6A1 COL6A2 COL6A3 COL6A4 COL6A5 COL6A6 | α1(VI)α2(VI)α3(VI) | Микрофибриллы в мягких тканях и хрящах | Миопатия Ульриха, миопатия Бэтлема, атопический дерматит |
| VII | COL7A1 | α1(VII)3 | Прикрепительные фибриллы в связке кожи и эпидермия | Буллезный эпидермолиз |
| VIII | COL8A1 COL8A2 | α1(VIII)α2(VIII) | Роговица, эндотелий | Дистрофия роговицы |
| IX | COL9A1 COL9A2 COL9A3 | α1(IX)α2(IX)α3(IX) | Хрящи, стекловидное тело | Синдром Стиклера, остеоартрит, эпифизарная дисплазия |
| X | COL10A1 | α1(X)3 | Гипертрофическая зона области роста | Метафизарная дисплазия Шмида |
| XI | COL11A1 COL11A2 | α1(XI)α2(XI)α1(II), α1(XI)α2(V)α1(II) | Хрящи, стекловидно тело | Коллагенопатия II и XI типов, остеопороз |
| XII | COL12A1 | α1(XII)3 | Мягкие ткани | Повреждения сухожилий |
| XIII | COL13A1 | α1(XIII)3 | Поверхность клеток, эпительные клетки | |
| XIV | COL14A1 | α1(IV)3 | Мягкие ткани | |
| XV | COL15A1 | α1(XV)3 | Эндотелиальные клетки | карцинома |
| XVI | COL16A1 | α1(XVI)3 | Повсеместно | |
| XVII | COL17A1 | α1(XVII)3 | Поверхность эпидермальных клеток | Буллезный эпидермиолиз, пузырчатка |
| XVIII | COL18A1 | α1(XVIII)3 | Эндотелиальные клетки | |
| XIX | COL19A1 | α1(XIX)3 | Повсеместно | Меланома, карцинома |
| XX | COL20A1 | α1(XX)3 | Выделен из куриного эмбриона | |
| XXI | COL21A1 | α1(XXI)3 | Кровеносные сосуды | |
| XXII | COL22A1 | α1(XXII)3 | Только в местах мышечно-сухожильных соединений | |
| XXIII | COL23A1 | α1(XXIII)3 | Опухолевые клетки | |
| XXIV | COL24A1 | α1(XXIV)3 | Формирующиеся кости | Остеохондроз |
| XXV | COL25A1 | α1(XXV)3 | Атеросклеротические бляшки | Болезнь Альцгеймера |
| XXVI | COL26A1=EMID2 | α1(XXVI)3 | Половые органы | |
| XXVII | COL27A1 | α1(XXVII)3 | Мягкие ткани | |
| XXVIII | COL28A1 | α1(XXVIII)3 | Нервная система |
7. Медицинские аспекты
Нарушения синтеза коллагена лежат в основе таких наследственных заболеваний, как дерматоспораксис у животных, латиризм (характерна разболтанность суставов, привычные вывихи), синдром Элерса-Данлоса (до 14 типов проявлений), врожденный остеогенез (болезнь стеклянного мужчины, врожденный рахит, врожденная ломкость костей), болезнь Марфана.
Характерным проявлением этих заболеваний является повреждение связочного аппарата, хрящей, костной системы, наличие пороков сердечных клапанов.
Болезни коллагена, в том числе так называемые коллагенозы, возникают из-за множества причин. Это может быть из-за мутации в гене, приводящей к изменению формы коллагеновой молекулы, или ошибки в пострансляционной модификации коллагена. Также болезни могут быть вызваны недостатком или «неправильной работой» ферментов, вовлеченных в биосинтез коллагена — дефицит ферментов гидроксилирования (пролин-, лизингидроксилазы), гликозилтрансфераз, N-проколлагеновой и С-проколлагеновой пептидаз, лизилоксидаз с последующим нарушением поперечных сшивок, дефицит меди, витаминов В6, C. При приобретенных болезнях, таких как цинга, восстановление баланса ферментов до нормального может привести к полному излечению.
Практически любая генная мутация, ведет к утрате или изменению функций коллагена, что, в свою очередь, отражается на свойствах тканей и органов. Генные мутации в коллагеновом домене могут привести к изменению формы тройной спирали, путем вставки/делеции аминокислоты или замены Gly на другое основание. Мутации в неколлагеновых доменах могут привести к неправильной сборке α-цепей в надмолекулярные структуры (фибриллы или сети), что также ведет к утрате функций. Мутантные a-цепи способны образовывать трех-спиральный комплекс с нормальными a-цепями. В большинстве случаев, такие комплексы не стабильны и быстро разрушаются, однако такая молекула может и нормально выполнять свою роль, если не затронуты функционально важные области. Большинство болезней, вызванных мутациями в коллагеновых генах, являются доминантными.
Примечания
- ↑ 12 Тропоколлаген (Tropocollagen) — dic.academic.ru/dic.nsf/medic/7689 в словаре dic.academic.ru
- XuMuK.ru — КОЛЛАГЕН — Химическая энциклопедия — www.xumuk.ru/encyklopedia/2062.html
- Би-би-си | Наука и техника | Найдены мягкие ткани тиранозавра? — news.bbc.co.uk/hi/russian/sci/tech/newsid_4382000/4382083.stm — 25 марта 2005 г.
- Элементы — новости науки: Коллаген из костей динозавров — это уже реальность — elementy.ru/news/430500. — 20.04.07
- Franzke CW, Bruckner P, Bruckner-Tuderman L. Collagenous transmembrane proteins: recent insights into biology and pathology. J Biol Chem. 2005 Feb 11;280(6):4005-8.
- Hoppe HJ, Reid KB. Collectins—soluble proteins containing collagenous regions and lectin domains—and their roles in innate immunity. Protein Sci. 1994 Aug;3(8):1143-58
Заболевание называется несовершенный остеогенез, а не врожденный
ППГ-белки могут гидролизоваться макрофагами (с участием ППГ-рецепторов) или межклеточными протеолитическими системами с образованием ППГ-пептидов, часто длиной около 30 аминокислотных остатков. ППГ-белки, и особенно образующиеся в результате их гидролиза ППГ-пептиды, попадают и в кровоток. Концентрация ППГ-пептидов в крови резко повышается при почечной недостаточности разного происхождения, в том числе при диабетической нефропатии. Это связано с тем, что элиминация ППГ-пептидов поисходит с участием почек: ППГ-пептиды фильтруются в клубочках, реабсорбируются клетками проксимальных канальцев и катаболизируются в лизосомах этих клеток.
В экспериментах на крысах показано, что введение ППГ-белков в кровь приводит к ковалентному связыванию этих белков с белками межклеточного матрикса во многих тканях и к появлению структурных и функциональных нарушений, сходных с теми, которые бывают при сахарном диабете.
ППГ проявляют многообразную биологическую активность: повышают проницаемость эндотелиальных клеток, соединяются с рецепторами макрофагов, эндотелиальных и мезангиальных клеток, активируют макрофаги к секреции цитокинов (рецепторным путем), подавляют образование NO и соответственно ингибируют расширение сосудов, усиливают окисление ЛНП. В крови больных диабетом обнаруживаются антитела к ППГ-пептидам.
6. Диабетические ангиопатии
Первичные проявления ангиопатий связаны с повреждением базальных мембран сосудов. Базальные мембраны (БМ) представляют собой пленки, на которых “растут” все клетки организма, кроме клеток соединительной ткани и крови: по одну сторону располагается клетка или слой клеток, а другой стороной БМ контактирует с фиброретикулярным межклеточным матриксом:
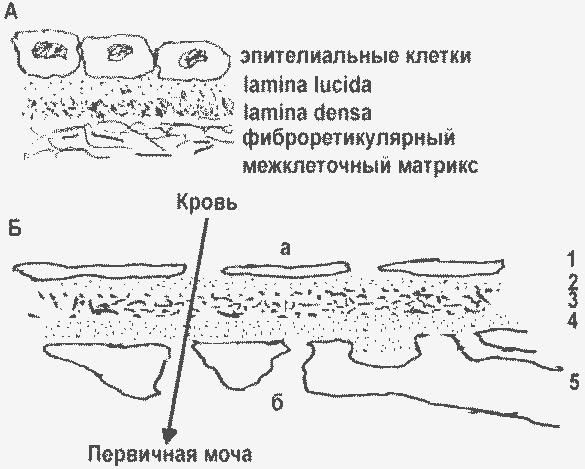
Базальные мембраны разных органов (А) и капилляров почечного клубочка (Б): а – люмен капилляры; б – полость Боуменовой капсулы; 1 – эндотелий; 2,3,4 – БМ клубочка (2 – lamina rara interna, 3 – lamina densa, 4 – lamina rara externa); 5 – подоцит, отростками контактирующий с БМ.
Эндотелий кровеносных сосудов, в том числе капилляров, тоже располагается на базальных мембранах. В отличие от всех прочих органов, в капиллярах почечного клубочка БМ трехслойна, а клетки располагаются по обе ее стороны.
В построении БМ участвуют коллагены, протеогликаны, неколлагеновые гликопротеины. Все компоненты БМ синтезируются прилегающими к ним клетками. Специальные функции выполняют интегрины — белки плазматической мембраны клеток, соединяющие клетку с БМ.
Коллаген IV типа — основной структурный белок базальных мембран. В геноме человека имеется шесть локусов, кодирующих шесть различающихся пептидных цепей, из которых строятся трехцепочечные молекулы коллагена IV. Чаще всего коллаген IV содержит цепи 1(IV) и 2(IV) в составе гетеротримеров [1(IV)]22(IV). Коллаген IV относится к сетеобразующим коллагенам. Взаимодействуя С-концевыми глобулярными доменами, молекулы образуют димеры, а при взаимодействии N-концевыми глобулярными доменами — тетрамеры.
Наряду с этими взаимодействиям конец в конец возможны и латеральные взаимодействия трехцепочечных спиральных доменов, в том числе с образованием суперспиралей. В конечном счете образуется сетевидная трехмерная структура с гексагональными ячейками размером 170 нм. Коллаген IV имеет также центры связывания с некоторыми белками клеточной мембраны, в том числе с интегринами.
Значительную часть массы БМ составляют протеогликаны. Эти молекулы содержат белковое ядро и ковалентно связанные с ним гликозамингликаны. В БМ в наибольших количествах содержатся гепарансульфат-протеогликаны (ГСПГ), и в значительно меньших — хондроитинсульфат-протеогликаны.
Гепарансульфат представляет собой неразветвленную цепь, построенную из глюкуроновой кислоты и глюкозамина, с последовательностью (ГлкА-ГлкN)n. Остаток глюкозамина может быть сульфирован по 2-й, 3-й и 6-й позициям. Молекулярная масса цепей обычно от 50 до 100 кДа. С одним белковым ядром ГСПГ обычно связано несколько цепей гепарансульфата. ГСПГ в БМ соединяется с коллагеном IV и ламинином определенными центрами белкового ядра и цепей гепарансульфата. Кроме того, ГСПГ разными способами может быть связан с поверхностью клеток, с участием как гликозамингликановой части, так и белкового ядра.
Ламинин — специфичный для БМ неколлагеновый гликопротеин. Молекула ламинина — тример , имеет крестообразную форму, с тремя короткими ветвями и одной длинной:
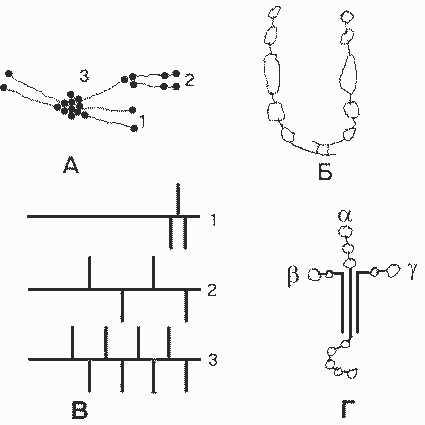
Молекулы базальных мембран. А. Многомолекулярные структуры, образуемые коллагеном IV: 1 — тетрамер; 2 — димер; 3 — мономер. Б. Фибронектин. В. Основные гепарансульфат-протеогликаны БМК: 1 — перлекан; 2 — ГСПГ 200 кДа; 3 — ГСПГ 350 кДа (горизонтальные линии — пептидные цепи, вертикальные линии — гепарансульфатные цепи). Г. Ламинин.
Известны три разные цепи , три цепи и две цепи . Варианты цепей могут комбинироваться по-разному при образовании тримерной молекулы. Пока обнаружено семь разных ламининов. Каждая из ветвей содержит глобулярные домены, которые имеют ряд центров свяэывания разных лигандов. Короткие ветви участвуют в образовании БМ путем взаимодейсв с другими молекулами ламинина, с коллагеном IV (при участии еще одного белка — нидогена), а также с интегрином 11 клеточной мембраны. Глобулярный домен длинной ветви участвует в межклеточной адгезии, взаимодействуя с разными интегринами и другими белками плазматической мембраны клеток. Длинная ветвь взаимодействует также с гепарансульфатными протеогликанами.
Интегрины представляют собой трансмембранные гликопротеины, -димеры. Каждая цепь пересекает мембрану один раз. Обе цепи имеют большие внеклеточные домены (аминоконцевые), образующие центр связывания, комплементарный соответствующему лиганду — компоненту матрикса. Внутриклеточный домен взаимодействуют с актиновым цитоскелетом при посредстве ряда промежуточных белков. С местом взаимодействия интегринов с цитоскелетом соседствуют сигнальные белки, которые активируются, когда к внеклеточному домену интегрина присоединяется лиганд. Таким лигандом могут быть ламинины, коллаген IV, протеогликаны.
Сила, с которой интегрин связывается с лигандом, может быстро и с высокой точностью регулироваться — свойство, которое называют “модуляция сродства”. В покоящемся (“неактивном”) состоянии интегрины имеют низкое сродство к своим лигандам, и это характерно для нормальных физиологических условий. Определенные стимулы превращают их в активные рецепторы с высоким сродством к лигандам. Это позволяет клеткам быстро приспосабливать их адгезивные свойства к изменившимся условиям без изменения количества молекул адгезии. А поскольку сигнал, полученный интегрином, передается в клетку, то могут изменяться не только адгезивные свойства, но и внутриклеточные процессы.
Благодаря этим свойствам интегрины оказываются участниками многих фундаментальных физиологических и патофизиологических процессов, включая эмбриогенез, морфогенез, заживление ран, воспаление, миграцию опухолевых клеток, миграцию лейкоцитов.
Таким образом, молекулы БМ содержат специфические центры связывания с другими молекулами БМ и с клеточными мембранами. Это обеспечивает высоко упорядоченное позиционирование молекул в БМ. Интегрины служат не только для механической связи клетки с БМ, но также и для передачи регуляторных сигналов, причем в двух направлениях — из БМ в клетку и из клетки в БМ.
Фиброретикулярный межклеточный матрикс (стромальный матрикс), с которым контактируют БМ (за исключением БМ почечных клубочков), в общих чертах сходен с БМ, но отличается от них по набору молекул и имеет менее упорядченную структуру. В частности, в отличие от БМ, в стромальном матриксе преобладают фибриллообразующие коллагены — в основном коллаген I, а также коллагены II, III, V и XI. Ламинины, характерные для БМ, отсутствуют в стромальном матриксе; вместо них здесь содержатся фибронектины.
В геноме человека один ген пептидной цепи фибронектина, но в результате альтернативного сплайсинга, а также постранляционной модификации (гликозилирование, фосфорилирование, сульфирование) образуется несколько форм белка. Фибронектин представляет собой димер двух одинаковых или немного различающихся субъединиц, соединенных антипараллельно двумя дисульфидными связями в области С-концов. Пептидная цепь образует несколько глобулярных доменов. Молекула фибронектина содержит специфические центры связывания с другими молекулами фибронектина, с коллагеном, гепарансульфатами, интегринами. Фибронектины синтезируются и секретируются многими клетками, включая фибробласты, гладкомышечные, эндотелиальные и эпителиальные клетки.
Нарушение высокоупорядоченной многомолекулярной структуры БМ (например, вследствие гликирования белков) приводит к изменению связей между молекулами БМ и внеклеточным доменом интегринов. Сигнал о повреждении с помощью интегринов передается в клетки, которые реагируют изменением ряда функциональных свойств, в том числе начинают синтезировать трансформирующий фактор роста — цитокин, стимулирующий синтез и подавляющий деградацию компонетов межклеточного матрикса.
Трансформирующий фактор роста (ТФР) — белок с молекулярной массой 12,5 кДа, гомодимер с дисульфидными связями между пептидными цепями. Он синтезируется большинством, если не всеми, клетками организма. Рецепторы ТФР — это трансмембранные Сер/Тре киназы. ТФР по аутокринному и паракринному механизмам активирует синтез компонентов матрикса — коллагенов, фибронектина, ламинина, протеогликанов, а также пролиферацию и дифференцировку клеток многих типов. С другой стороны, он снижает синтез протеаз и увеличивает содержание ингибиторов протеаз, в результате подавляется деградация компонентов межклеточного матрикса. Кроме того, ТФР стимулирует экспрессию интегринов, и тем самым способствует образованию макроструктур БМ. Таким путем обеспечивается рост БМ и фиброретикулярного межклеточного матрикса, необходимый при пролиферации клеток в норме, а также при репарации повреждений тканей.
Примером репарации повреждений может служить заживление кожной раны. В месте повреждения происходит агрегация тромбоцитов, из гранул которых освобождается ТФР-, а также тромбоцитарный фактор роста. Оба эти цитокина по паракринному механизму индуцируют секрецию ТФР- клетками в области повреждения, и таким путем инициируется процесс репарации повреждения. ТФР- служит аттрактантом для фибробластов и индуцирует синтез коллагенов и других компонентов матрикса в привлеченных фибробластах и в клетках, контактирующих с БМ. Во взаимодействии с ТФР- в репарации повреждения участвуют и другие цитокины. Тромбоцитарный фактор роста, а также фактор некроза опухолей и интерлейкин-1 индуцируют пролиферацию и миграцию клеток по мере образования матрикса. Фактор роста фибробластов индуцирует образование новых сосудов.
Как уже отмечено, тромбоцитарный фактор роста стимулирует экспрессию ТФР-. С другой стороны, ТФР- блокирует действие тромбоцитарного фактора, подавляя экспрессию его рецепторов. Возможно, такое взаимодействие имеет значение для замедления и выключения процесса на завершающих стадиях репарации.
При сахарном диабете в условиях непрерывного действия патогенного фактора (высокая концентрация глюкозы и гликирование белков) происходит дефектное ремоделирование БМ, главным образом, вероятно, вследствие постоянной секреции ТФР-: нарушается баланс между синтезом и распадом компонентов базальной мембраны в сторону усиления синтеза, нарушаются нормальные пропорции в содержании компонентов БМ и его структурная организация. Утолщение базальных мембран капилляров — один из самых ранних и постоянных признаков сахарного диабета. В области фиброретикулярного межклеточного матрикса диабетические повреждения тоже приводят к накоплению компонентов матрикса в результате активации фибробластов, синтезирующих коллагены и другие компоненты матрикса. При этом клетки пораженного органа замещаются рубцовой соединительной тканью (другие термины для описания такого процесса — фиброз, склероз).
Разные органы имеют специфические особенности молекулярного состава и структуры межклеточного матрикса, и, понятно, разный клеточный состав и функции. Поэтому диабетические повреждения матрикса, одинаковые в своей молекулярной основе в начальных стадиях, развиваются характерными для каждого органа путями.
Диабетические макроангиопатии . Поражения крупных и средних сосудов сердца, мозга, нижних конечностей обычно имеют форму атеросклероза, однако развиваются в гораздо более раннем возрасте, чем у лиц, не страдающих диабетом. Смертность от сердечно-сосудистых заболеваний при диабете примерно втрое больше, чем при других формах сердечно-сосудистых заболеваний.
Большинство патологических изменений артерий происходит в интиме. Повреждение в результате гликирования может начинаться с БМ интимы: цитокиновые сигналы приводят к изменению реактивности клеток (эндотелиальных, гладкомышечных, макрофагов), начинается поглощение липопротеинов и образование бляшки. Этому способствует хронически повышенное содержание ЛОНП (атерогенные ЛП) в крови больных диабетом.
Возможен и другой механизм повреждения артериальной стенки при сахарном диабете — гликирование белков, в частности коллагена и эластина, в среднем (media) и наружном (adventitia) слоях. Механические свойства упорядоченных сетевых структур, построенных из коллагена и эластина, имеют решающее значение для функционирования артерий и точно подогнаны к гемодинамическим условиям в кровотоке каждого участка артериального русла.
Коллаген и эластин — очень медленно обменивающиеся белки, и поэтому велика вероятность накопления в них повреждений, связанных с гликозилированием. После инкубации в течение нескольких дней отрезков артерий в растворе глюкозы в них обнаруживаются ППГ-белки, в том числе коллаген и эластин, снижается прочность и растяжимость артериальной стенки. Недавно обнаружен ППГ, обозначенный как NFC-1 (его строение пока неизвестно). NFC-1 с высокой активностью образует поперечные сшивки между молекулами коллагена. В аорте больных сахарным диабетом количество поперечных сшивок, образованных NFC-1, увеличивается с возрастом, и достигает величин до одной сшивки на одну молекулу коллагена. Это, конечно, может существенно изменить физические свойства сосуда. Однако не исключаются и нарушения, связанные с изменением скорости синтеза и деградации компонентов матрикса. Например, относительное количество гепарансульфата в средней оболочке коронарных артерий у больных сахарным диабетом снижено почти вдвое по сравнению с нормой.
Микроангиопатии. Нефропатия — одна из основных форм диабетических микроангиопатий.
Нефропатия бывает примерно у трети больных ИЗСД. Основной характеристикой диабетической нефропатии на завершающих стадиях является гломерулосклероз и нефросклероз, приводящие к хронической почечной недостаточности и к гибели больных от уремии. Клинические признаки нефропатии появляются через 10 — 15 лет после манифестации диабета, и еще в течение нескольких лет болезнь развивается до финальных состояний с появлением симптомов уремии. Диабетическая нефропатия — одна из главных причин инвалидизации и смертности больных сахарным диабетом.
Основу капиллярной стенки в клубочках составляет базальная мембрана клубочков (БМК). На внутренней поверхности БМК располагаются эндотелиальные клетки, на внешней — подоциты. Фильтрация плазмы происходит через фенестры (окна) – промежутки между эндотелиальными клетками на внутренней поверхности капилляра, и между отростками подоцитов – на наружной поверхности. Между капиллярами находится мезангий, имеющий древовидную форму и поддерживающий капилляры. Мезангий содержит мезангиальные клетки и мезангиальный матрикс. Мезангиальные и эпителиальные клетки синтезируют и секретируют компоненты мезангиального матрикса и БМК.
Основная функция почечного клубочка — обеспечить достаточную скорость фильтрации плазмы и в то же время жестко ограничить прохождение альбумина и других белков плазмы. И то, и другое определяется свойствами БМК. Плотность укладки молекул коллагена IV типа и протеогликанов определяет избирательность фильтрации по размеру фильтрующихся молекул. Гепарансульфатные цепи ГСПГ содержат много сульфатных групп, ионизированных при физиологических значениях рН. Отрицательный заряд этих молекул при фильтрации плазмы крови обеспечивает избирательную проницаемость БМК для белков в зависимости от их заряда. Альбумин человека, имеющий молекулярную массу 66 кДа (эллипсоид размером 38х150 ангстрем) и отрицательный заряд (-18 при рН 7,4), в норме лишь в небольших количествах пересекает БМК и попадает в первичную мочу. Профильтровавшийся альбумин затем эндоцитируется тубулярными клетками. Т о альбуминурия является следствием главным образом нарушения проницаемости БМК, но определенный вклад может вносить и нарушение функции тубулярных клеток.
Базальные мембраны почечных клубочков — очень интенсивно функционирующая структура: у человека за сутки фильтруется через них 180 л плазмы крови, т. е. вся жидкость организма четырежды за сутки проходит через БМК, и БМК выступает главным функциональным элементом клубочка. Канальцы нефрона тоже интенсивно функционирующие структуры, только поток воды и растворенных в ней веществ идет в обратном направлении — из первичной мочи в кровь, причем ряд веществ реабсорбируется против градиента концентрации. Однако масса канальцевой зоны значительно больше массы клубочков. Т о БМК в большей мере подвержена риску повреждения, чем другие органы, поскольку вместе с плазмой через нее идет массивный поток токсичных веществ, включая ППГ. Вероятно, гомеостаз БМК в норме поддерживается соответствующей скоростью репарации повреждений. К сожалению, нет достаточных сведений о скорости обновления белков БМК.
Считают, что при диабете повышенная в течение многих лет концентрация ППГ приводит к утолщению стенки кровеносных сосудов, экспансии мезангиального матрикса, утолщению базальных мембран. По результатам исследований гломерулярных клеток в культуре и клубочков от крыс со стрептозотоциновым диабетом можно заключить, что при диабете индуцируется экпрессия мРНК коллагенов I. III, IV и VI типов, фибронектина, ламинина, и снижается синтез мРНК гепарансульфатных протеогликанов. Уменьшение содержания гепарансульфатов относительно других компонентов ведет к нарушению структурной организации БМК и увеличению ее проницаемости для белков.
При инкубации мезангиальных клеток крысы с экзогенными ППГ активируется экспрессия мРНК коллагена IV, ламининов, гепарансульфата. Если здоровым мышам ввести ППГ-альбумин (мышиный), то увеличивается содержание компонетов межклеточного матрикса и активируется экспрессия мРНК ТФР-. Мышам линии с диабетом и с повышенным содержанием гликированного альбумина в крови вводили мышиные моноклональные антитела, специфичные к мышиному гликированному альбумину. Через 4 недели наблюдали заметное снижение протеинурии, экспансии мезангиального матрикса и экспрессии мРНК коллагена IV и фибронектина. Т о циркулирующий ППГ-альбумин хронически повреждает клубочки, которые отвечают гиперпродукцией матрикса, опосредованной ТФР-.
Накопление белков межклеточного матрикса и изменение их состава в гломерулярной, тубулярной и итерстициальной областях почки, утолщение базальной мембраны клубочков, гипертрофия и, в меньшей мере, ускоренная пролиферация мезангиальных клеток — основные патоморфологические изменения при диабетической нефропатии. При усиленном образовании межклеточного матрикса происходит прогрессивное утолщение стенки сосудов, снижение скорости клубочковой фильтрации, нарушение проницаемости базальной мембраны (и как
Если вы нашли ошибку, пожалуйста, выделите фрагмент текста и нажмите Ctrl+Enter.
