Механизм транспорта глюкозы из крови в клетки
Транспорт моносахаридов из просвета кишечника в клетки слизистой оболочки может осуществляться путем облегченной диффузии и активного транспорта. При активном транспорте глюкоза и Na+ проходят с люминальной стороны, связываясь с разными участками белка-переносчика. При этом Na+ поступает в клетку под влиянием электрохимического градиента и «тащит» глюкозу за собой. Следовательно, чем больше градиент Na+, тем больше поступление глюкозы. Если концентрация Na+ во внеклеточной жидкости уменьшается, транспорт глюкозы подавляется. Градиент концентрации Na+ являющийся движущей силой этого симпорта, создается работой Na+K+ нacoca.
Глюкоза из клетки кишечника затем перемещается во внеклеточную жидкость и далее в кровь с помощью облегченной диффузии. Поступающая из кишечника глюкоза с кровью воротной вены попадает в печень, где часть ее задерживается, а часть через общий кровоток попадает в клетки других органов и тканей.
Потребление глюкозы клетками из кровотока происходит также путем облегченной диффузии при участии специальных белков-транспортеров. Следовательно, скорость трансмембранного потока глюкозы зависит только от градиента ее концентрации.
Исключением являются клетки мышц и жировой ткани, где облегченная диффузия регулируется инсулином. В отсутствие инсулина плазматическая мембрана этих клеток непроницаема для глюкозы.
Белки-переносчики (транспортеры глюкозы — ГЛЮТ) обнаружены во всех тканях. Существует несколько разновидностей ГЛЮТ, которые пронумерованы по порядку их обнаружения.
Все 5 типов ГЛЮТ имеют сходную первичную структуру.
ГЛЮТ-1 служит для обеспечения стабильного потока глюкозы в мозг. В других тканях он поставляет глюкозу в клетки, когда они находятся в стоянии покоя.
ГЛЮТ-2 обнаружен в клетках органов, выделяющих глюкозу в кровь. Именно при участии ГЛЮТ-2 глюкоза переходит в кровь из энтероцитов после всасывания в кишечнике.
ГЛЮТ-3 обладает большим, чем ГЛЮТ-1, сродством к глюкозе. Он также обеспечивает постоянный приток глюкозы к клеткам нервной ткани.
ГЛЮТ-4 — главный переносчик глюкозы в мышцах и адипоцитах.
ГЛЮТ-5 встречается главным образом в клоках тонкой кишки. Его функции известны недостаточно.
Все типы ГЛЮТ могут находиться как в плазматической мембране, так и в цитозольных везикулах.
В отсутствие инсулина ГЛЮТ-4 (и в меньшей мере ГЛЮТ-1) почти полностью находится в цитоплазме (рис.3). Влияние инсулина на такие клетки приводит к перемещению везикул, содержащих ГЛЮТ, к плазматической мембране и их слиянию с ней, после чего возможен облегченный транспорт глюкозы в эти клетки. После снижения концентрации инсулина в крови белки-транспортеры глюкозы снова перемещаются в цитозоль.
В клетки печени глюкоза проходит при участии ГЛЮТ-2, независимого от инсулина. Концентрация глюкозы в гепатоцитах в период пищеварения повышается соответственно ее уровню в крови воротной вены. Хотя инсулин и не влияет на транспорт глюкозы, он усиливает приток глюкозы в гепатоцит в период пищеварения косвенным путем, индуцируя синтез глюкокиназы и ускоряя тем самым фосфорилирование глюкозы.

Транспорт глюкозы из первичной мочи в клетки канальцев происходит путем активного транспорта подобно тому, как это происходит с люминальной стороны кишечника в клетки. Благодаря этому глюкоза может поступать в клетки даже в том случае, если ее концентрация в просвете кишечника или в первичной моче меньше, чем в клетках. Глюкоза реабсорбируется из первичной мочи почти полностью (на 99%) к конечной части канальцев.
| Sugar_tr | |
|---|---|
| Идентификаторы | |
| Символ | Sugar_tr |
| Pfam | PF00083 |
| Pfam clan | CL0015 |
| InterPro | IPR005828 |
| PROSITE | PDOC00190 |
| TCDB | 2.A.1.1 |
| OPM superfamily | 15 |
| OPM protein | 4gc0 |
| Доступные структуры белков | |
| Pfam | структуры |
| PDB | RCSB PDB; PDBe; PDBj |
| PDBsum | 3D-модель |
Глюкозные транспортёры (англ. Glucose transporter , сокр. GLUT или ГЛЮТ) — большая группа мембранных белков, отвечающих за перенос глюкозы через клеточную мембрану. Поскольку глюкоза является жизненно важным источником энергии, эти белки присутствуют у всех типов живых организмов.
Отдельно выделяют GLUT (ГЛЮТ), или SLC2A — семейство белков-переносчиков глюкозы, встречающихся в большинстве клеток млекопитающих. Так, в человеческом геноме закодировано двенадцать белков семейства GLUT. Они представляют собой транспортные белки-унипортеры.
Содержание
Синтез свободной глюкозы [ править | править код ]
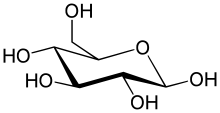
Большинство не автотрофных организмов неспособны производить свободную глюкозу, поскольку у них отсутствует экспрессия фермента глюкозо-6-фосфатазы. Таким образом, они способны осуществлять только поглощение и катаболизм глюкозы. Однако, в условиях голодания некоторые ткани и органы, такие как гепатоциты, кишечник, мышцы, мозг и почки, способны осуществлять синтез глюкозы, вследствие активации процесса глюконеогенеза.
Транспорт глюкозы у дрожжей [ править | править код ]
В клетках модельного организма Saccharomyces cerevisiae транспорт глюкозы происходит путём облегчённой диффузии [en] [1] . Большинство транспортных белков этого организма относятся к семейству Hxt, но есть и множество белков транспортёров из других семейств [2] .
| Название | Характеристики | Описание |
| Snf3 | высокое сродство к глюкозе; подавляется глюкозой; низкий уровень экспресси; подавляет синтез Hxt6 | |
| Rgt2 | низкое сродство к глюкозе; низкий уровень экспресси | |
| Hxt1 | Km: 100 мM [3] , 129 — 107 мM [1] | низкое сродство к глюкозе; синтез индуцируется высоким уровнем глюкозы |
| Hxt2 | Km = 1.5 [1] — 10 мM [3] | высокое/среднее сродство к глюкозе; синтез индуцируется низким уровнем глюкозы [3] |
| Hxt3 | Vm = 18.5, Kd = 0.078, Km = 28.6/34.2 [1] — 60 мM [3] | низкое сродство к глюкозе [3] |
| Hxt4 | Vm = 12.0, Kd = 0.049, Km = 6.2 [1] | среднее сродство к глюкозе [3] |
| Hxt5 | Km = 10 мM [4] | Среднее сродство к глюкозе. Сильная экспрессия в фазе стационарного роста, при образовании спор и в условиях низкой концентрации глюкозы. Транскрипция подавляется глюкозой [4] . |
| Hxt6 | Vm = 11.4, Kd = 0.029, Km = 0.9/14 [1] , 1.5 mM [3] | высокое сродство к глюкозе [3] |
| Hxt7 | Vm = 11.7, Kd = 0.039, Km = 1.3, 1.9, [1] 1.5 mM [3] | высокое сродство к глюкозе [3] |
| Hxt8 | низкий уровень экспрессии [3] | |
| Hxt9 | участвует в множественной лекарственной устойчивости [3] | |
| Hxt11 | участвует в множественной лекарственной устойчивости [3] | |
| Gal2 | Vm = 17.5, Kd = 0.043, Km = 1.5, 1.6 [1] | высокое сродство к галактозе [3] |
Транспорт глюкозы у млекопитающих [ править | править код ]
GLUT (ГЛЮТ) — интегральные мембранные белки, содержащие 12 пересекающих клеточную мембрану спиралей, при этом амино- (N-конец) и карбоксильный (C-конец) концы выходят со стороны клеточной мембраны, обращенной к цитоплазме. ГЛЮТ переносят глюкозу и связанные гексозы в соответствии с моделью альтернативных конформаций [5] [6] [7] , которая предсказывает, что транспортёр выставляет свой единственный участок связывания субстрата либо внутрь, либо наружу клетки. Связывание глюкозы с участком провоцирует конформационное изменение, связанное с транспортом, и приводит к высвобождению глюкозы с противоположной стороны клеточной мембраны. Внутренние и внешние участки связывания глюкозы, как считается, расположены на трансмембранных сегментах 9, 10 и 11 [8] . Мотив QLS на седьмом трансмембранном сегменте возможно может определять селективность и аффинность транспорта [9] [10] .
Типы [ править | править код ]
Каждая изоформа глюкозного транспортёра играет определенную роль в метаболизме глюкозы, в зависимости от её тканевой экспрессии, субстратной специфичности, кинетики транспорта и регуляции экспрессии в различных физиологических условиях [11] . На данный момент обнаружено тринадцать белков-транспортёров семейства GLUT/SLC2 [12] . На основании сходства аминокислотных последовательностей они разделены на три подкласса.
Класс I [ править | править код ]
К классу I относятся транспортёры GLUT1-GLUT4 [13] .
| Название | Распространение | Описание |
| GLUT1 | Широко распространён в зародышевых тканях. У взрослых сильнее всего экспрессируется в эритроцитах и эндотелиальных клетках барьерных тканей, например в гемато-энцефалическом барьере. Помимо этого, он ответственен за минимальный базальный уровень поглощение глюкозы всеми клетками организма, необходимый для поддержания клеточного дыхания. | Уровень GLUT1 в клеточной мембране повышается при снижении уровня глюкозы и уменьшается при его повышении. |
| GLUT2 | Это транспортёр глюкозы, работающий в двух направлениях. Экспрессируется клетками почечных канальцев, печени и бета-клетками поджелудочной железы. Также его можно обнаружить в базолатеральной мембране эпителия тонкой кишки. Двунаправленный транспортёр необходим клеткам печени для поглощения глюкозы в процессе гликолиза, и её высвобождения в процессе глюконеогенеза. В бета-клетках поджелудочной железы, свободная глюкоза необходима для того, что бы клетки могли точно измерить уровень глюкозы в сыворотке крови. Кроме этого GLUT2 осуществляет транспорт глюкозы, галактозы и фруктозы из клеток слизистой кишечника в просвет кровеносных сосудов. | Это изоформа с низким сродством. Существуют данные, что основными транспортёрами глюкозы в бета-клетки на самом деле являются GLUT1 и GLUT3. |
| GLUT3 | В основном экспрессируется в нейронах (где, как полагают, он является главной изоформой глюкозного транспортёра) и плаценте. | Это изоформа с высоким сродством к глюкозе, что позволяет ей осуществлять транспорт при низких концентрациях глюкозы. |
| GLUT4 | Обнаружен в жировой ткани, а также в скелетных мышцах и миокарде. | Этот транспортёр регулируется инсулином. Осуществляет инсулин-зависимое поглощение глюкозы. |
Классы II/III [ править | править код ]
К классу II относятся:
К классу III относятся:
Большинство транспортёров классов II/III было обнаружено относительно недавно в результате деятельности различных геномных проектов.
Функции данных изоформ на данный момент неясны. Некоторые из них (GLUT6, GLUT8) состоят из мотивов, которые способствуют сохранению транспортёров внутри клетки, и таким образом предотвращают транспорт глюкозы. Существуют ли механизмы, способствующие транслокации этих транспортёров на клеточную поверхность, неизвестно, но было выяснено, что инсулин не способствует такой транслокации.
Открытие натрий-глюкозного ко-транспортёра [ править | править код ]
В августе 1960 года, в Праге, Роберт К. Крэйн представил общественности своё открытие: механизм вторично-активного транспорта глюкозы в сопряжении с натрием в клетках кишечника [16] . Открытие Крэйном вторично-активного транспорта было первым открытием, показавшим значимость сопряжения потоков в биологии [17] [18] .
Конечными продуктами гидролиза углеводов в желудочно-кишечном тракте являются всего три вещества: глюкоза, фруктоза и галактоза. При этом на долю глюкозы приходится почти 80% общего количества этих моносахаридов. После всасывания в кишечнике большая часть фруктозы и практически вся галактоза преобразуются в печени в глюкозу. Вследствие этого в крови присутствуют только небольшие количества фруктозы и галактозы. В итоге процессов превращения глюкоза становится единственным представителем углеводов, транспортируемым во все клетки организма.
Соответствующие ферменты, необходимые клеткам печени для обеспечения процессов взаимного превращения моносахаридов — глюкозы, фруктозы и галактозы — показаны на рисунке. В результате этих реакций, когда печень высвобождает моносахариды обратно в кровь, окончательным продуктом, попадающим в кровь, становится глюкоза. Причина этого явления заключается в том, что клетки печени содержат большое количество глюкозофосфатазы, поэтому глюкозо-6-фосфат может расщепляться на глюкозу и фосфат. Затем глюкоза транспортируется через мембраны клеток обратно в кровь.
Хотелось бы еще раз подчеркнуть, что обычно более 95% всех моносахаридов, циркулирующих в крови, представлены конечным продуктом превращения — глюкозой.
Транспорт глюкозы через мембрану клетки. Прежде чем глюкоза будет использована клетками тканей, она должна транспортироваться через мембраны клеток в цитоплазму. Однако глюкоза не может свободно диффундировать через поры в клеточных мембранах, т.к. максимальная молекулярная масса частиц должна быть в среднем равна 100, в то время как молекулярная масса глюкозы составляет 180. Тем не менее глюкоза может относительно легко проникать внутрь клеток благодаря механизму облегченной диффузии. Основы этого механизма обсуждались в главе 4, напомним его основные моменты.
Насквозь прободая липидную мембрану клеток, белки-переносчики, количество которых в мембране достаточно велико, могут взаимодействовать с глюкозой. В такой связанной форме глюкоза может транспортироваться белком-переносчиком с одной стороны мембраны на другую и там отделяться; если с одной стороны мембраны концентрация глюкозы выше, чем с другой, то глюкоза будет транспортироваться туда, где ее концентрация ниже, а не в противоположном направлении. Транспорт глюкозы через клеточные мембраны в большинстве тканей резко отличается от транспорта, который наблюдается в желудочно-кишечном тракте или в эпителиоцитах канальцевого аппарата почек.
В обоих упомянутых случаях транспорт глюкозы опосредован сопряженным с механизмом активного транспортом натрия. Активный транспорт натрия обеспечивает энергией процесс всасывания глюкозы против градиента концентрации. Такой сопряженный с натрием активный механизм транспорта глюкозы встречается только в специализированных эпителиоцитах, приспособленных для активного процесса абсорбции глюкозы. В других клеточных мембранах глюкоза транспортируется только из областей с высокой концентрацией в область низких концентраций с помощью механизма облегченной диффузии, возможность которого создается особыми свойствами расположенного в мембране белка-переносчика глюкозы.
Если вы нашли ошибку, пожалуйста, выделите фрагмент текста и нажмите Ctrl+Enter.
