Эндокринная функция поджелудочной железы физиология
Поджелудочная железа состоит из экзокринной и эндокринной частей, которые развиваются из одного источника — энтодермы первичной кишки. В экзокринной части, составляющей у человека 98% всей массы железы, вырабатывается пищеварительный сок, который поступает в двенадцатиперстную кишку (см. разд. 11.2.3) и содержит ферменты, необходимые для расщепления белков, жиров и углеводов. В эндокринной части — панкреатических островках (Лангерганса) — синтезируются гормоны, регулирующие метаболические процессы, в особенности углеводный обмен. Гормоны, вырабатываемые эндокринной частью. В панкреатических островках большинства позвоночных выявляют два основных типа железистых клеток, вырабатывающих разные гормоны: инсулин и глюкагон. Клетки, синтезирующие инсулин, называют (β— (или В—) клетками; клетки, вырабатывающие глюкагон, — α— (или А—) клетками. Кроме них определен третий тип клеток — δ—клетки, в которых синтезируется соматостатин.
Р—клетки, синтезирующие инсулин, обнаружены у всех позвоночных. У низших позвоночных (круглоротые, хрящевые рыбы) α—клетки и глюкагон не выявлены. У всех остальных позвоночных в панкреатических островках синтезируются инсулин и глюкагон, основная функция которых состоит в регуляции метаболических процессов; от этих гормонов в значительной степени зависит уровень глюкозы в крови, необходимый для нормальной жизнедеятельности организма.
Инсулин представляет собою полипептид с молекулярной массой около 6 кДа. Он состоит из двух цепей, соединенных двумя дисульфидными мостиками. Инсулин образуется из предшественника — проинсулина — под влиянием протеаз. Активность проинсулина невелика (5% активности инсулина). Превращение проинсулина в инсулин происходит в β—клетках. Инсулин был первым полипептидным гормоном, синтезированным искусственно.
В настоящее время инсулин (или инсулиноподобный гормон) обнаружен у многих беспозвоночных животных, что свидетельствует, по—видимому, не только о его древности, но и важной роли в регуляции метаболических процессов.
Глюкагон — полипептид, построенный из одной цепи с молекулярной массой около 3,5 кДа. Кроме α—клеток панкреатических островков глюкагон вырабатывается также в слизистой оболочке кишечника (энтероглюкагон). Функция энтероглюкагона несколько отличается от роли панкреатического глюкагона.
Инсулин является анаболическим гормоном с широким спектром действия. Его роль состоит в повышении синтеза углеводов, жиров и белков. Он стимулирует метаболизм глюкозы. Под влиянием инсулина увеличивается проницаемость для глюкозы клеток миокарда, скелетных мышц, что усиливает ток глюкозы внутрь клеток и ее обмен. Он необходим для прохода аминокислот сквозь ГЭБ (ГЕМАТОЭНЦЕФАЛИЧЕСКИЙ БАРЬЕР). Инсулин стимулирует синтез гликогена в печени, снижает глюконеогенез (образование глюкозы из аминокислот), влияет на обмен липидов, усиливая способность жировой ткани и печени к накоплению их резервов в форме триглицеридов. Инсулин активно взаимодействует с другими гормонами, как, например, гормоном роста.
Действие глюкагона на метаболические процессы осуществляется в печени и реализуется через аденилатциклазу и цАМФ. Последний, в свою очередь, активизирует ферменты, контролирующие скорость гликогенолиза, глюконеогенеза и липолиза. Основной эффект гормона состоит в усилении гликогенолиза в печени, в чем глюкагон является синергистом адреналина. По воздействию на уровень глюкозы в плазме крови глюкагон является антагонистом инсулина.
Концентрация гормонов поджелудочной железы в плазме крови зависит от поступления глюкозы с пищей, скорости ее окисления и от уровня других гормонов, участвующих в регуляции содержания глюкозы. При повышении содержания глюкозы в крови усиливается секреция инсулина, при ее снижении выделяется больше глюкагона. Регуляция уровня гормона в крови осуществляется по механизму обратной связи.
Дыхание.
Дыханием называется совокупность физиологических процессов, обеспечивающих поступление кислорода в организм, использование его тканями для окислительно-восстановительных реакций и выведения из организма углекислого газа. Дыхание человека и животных можно разделить на ряд процессов: 1 — обмен газами между окружающей средой и альвеолами легких (внешнее дыхание), 2 — обмен газами между альвеолярным воздухом и кровью, 3 — транспорт газов кровью, 4 — обмен газами между кровью и тканями, 5 — потребление кислорода клетками и выделение углекислоты (клеточное, или тканевое, дыхание). Внешнее дыхание осуществляется благодаря изменениям объема грудной клетки и сопутствующим изменениям объема легких. Объем грудной клетки увеличивается во время вдоха, или инспирации, и уменьшается во время выдоха, или экспирации. Эти дыхательные движения обеспечивают легочную вентиляцию. В дыхательных движениях участвуют три анатомо-функциональных образования: 1) дыхательные пути, которые по своим свойствам являются слегка растяжимыми, сжимаемыми и создают поток воздуха, особенно в центральной зоне; 2) эластичная и растяжимая легочная ткань; 3) грудная клетка, состоящая из пассивной костно-хрящевой основы, которая объединена соединительнотканными связками и дыхательными мышцами. Грудная клетка относительно ригидна на уровне ребер и подвижна на уровне диафрагмы.
Известно два биомеханизма, которые изменяют объем грудной клетки: поднятие и опускание ребер и движения купола диафрагмы; оба биомеханизма осуществляются дыхательными мышцами. Дыхательные мышцы подразделяют на инспираторные и экспираторные.
Инспираторными мышцами являются диафрагма, наружные межреберные и межхрящевые мышцы. При спокойном дыхании объем грудной клетки изменяется в основном за счет сокращения диафрагмы и перемещения ее купола.
Экспираторными мышцами являются внутренние межреберные и мышцы брюшной стенки, или мышцы живота. Последние нередко относят к главным экспираторным мышцам. У нетренированного человека они участвуют в дыхании при вентиляции легких свыше 40 л*мин-1. Внутриплевральное давление — давление в герметично замкнутой плевральной полости между висцеральными и париетальными листками плевры. В норме это давление является отрицательным относительно атмосферного. Внутриплевральное давление возникает и поддерживается в результате взаимодействия грудной клетки с тканью легких за счет их эластической тяги. При этом эластическая тяга легких развивает усилие, которое всегда стремится уменьшить объем грудной клетки. В формировании конечного значения внутриплеврального давления участвуют также активные силы, развиваемые дыхательными мышцами во время дыхательных движений. Наконец, на поддержание внутриплеврального давления влияют процессы фильтрации и всасывания внутриплевральной жидкости висцеральной и париетальной плеврами. Внутриплевральное давление может быть измерено манометром, соединенным с плевральной полостью полой иглой.
Итак, дыхательный цикл включает две фазы: вдох (инспирацию) и выдох (экспирацию). Обычно вдох несколько короче выдоха: у человека их соотношение равно в среднем 1 : 1,3. Соотношение компонентов дыхательного цикла (длительность фаз, глубина дыхания, динамика давления и потоков в воздухоносных путях) характеризует так называемый паттерн дыхания.
Во время вдоха, вызванного сокращением мышц—инспираторов, вследствие увеличения объема грудной полости отрицательное давление в плевральной полости возрастает. Поэтому, а также благодаря адгезивным силам, возникающим между прилегающими друг к другу париетальным и висцеральным листками плевры, легкие растягиваются еще больше. Увеличение легочного объема, в свою очередь, ведет к падению внутрилегочного (внутриальвеолярного) давления, что и служит причиной поступления в них через дыхательные пути атмосферного воздуха.
Как только инспираторная мускулатура расслабляется, возросшая в ходе вдоха эластическая тяга легких возвращает их в исходное состояние. При этом из—за уменьшения объема легких давление в них становится положительным, воздух из альвеол устремляется через воздухоносные пути наружу.
Таким образом, выдох в отличие от вдоха происходит пассивно, за счет высвобождения потенциальной энергии растянутых во время инспираторной фазы легких.
Лишь при форсированном дыхании включаются мышцы—экспираторы, активно способствующие дополнительному уменьшению объема грудной полости, причем давление в плевральной полости может становиться положительным.
Регуляция дыхания.
Сокращения дыхательных мышц обеспечиваются ритмической активностью нейронов дыхательного центра. Неотъемлемым звеном аппарата регуляции дыхания являются также хеморецепторные и механорецепторные системы, обеспечивающие нормальную работу центрального дыхательного механизма в соответствии с потребностями организма в обмене газов. В структуру дыхательного центра входят следующие образования:
1) в двух ограниченных участках продолговатого мозга с обеих сторон располагаются инспираторные нейроны, разряжающиеся незадолго до вдоха и в течение самого вдоха (это область рострального [переднего, носового] отдела обоюдного ядра и область, прилегающая к одиночному тракту), которые для простоты объединяют под названием "центра вдоха".
2) в участке, расположенном вдоль обоюдного ядра каудальнее инспираторной области, обнаружены экспираторные нейроны, разряжающиеся при выдохе и во время дыхательной паузы. Этот участок упрощенно называют "центром выдоха".
3) в медиальной инспираторной области, расположенной вдоль одиночного тракта обнаружены как R-нейроны, возбуждающиеся при вдохе, так и R- нейроны, которые разряжаются не только одновременно с R-нейронами, но также во время паузы последних. Активность R-нейронов увеличивается при максимальном растяжении легких. Вследствие этого полагают, R-нейроны оказывают тормозное влияние на R-нейроны.
Ритмическое чередование вдоха и выдоха связано с переменными разрядами инспираторных и экспираторных нейронов. Во время активности инспираторных нейронов экспираторные клетки "молчат", и наоборот, т.е. клетки оказывают друг на друга реципрокное тормозное влияние. Для объяснения механизма, ограничивающего деятельность разряда клеток, выд-вигается ряд гипотез, в одних делается упор на свойства нейронов, а в других — на тормозные межклеточные взаимодействия.
Основной регулятор активности центрального дыхательного механизма — афферентная сигнализация о газовом составе внутренней среды организма. Эта сигнализация исходит от центральных (бульбарных) и периферических (артериальных) хеморецепторов.
Бульбарные хемочувствительные зоны. На вентролатеральной поверхности продолговатого мозга расположены нейрональные структуры, чувствительные к напряжению С02 и концентрации ионов H+ во внеклеточной жидкости мозга. Локальное воздействие этих факторов вызывает увеличение дыхательного объема и легочной вентиляции. Напротив, снижение Pco2 и подщелачивание внеклеточной жидкости мозга, а также блокирование холодом или разрушение этих структур ведет к полному или частичному исчезновению реакции дыхания на избыток С02 (гиперкапнию) и ацидоз, а также к резкому угнетению инспираторной активности вплоть до остановки дыхания. Артериальные хеморецепторы. В области бифуркации сонной артерии расположен так называемый сонный, или каротидный, гломус (клубок, тельце). Он обильно снабжается кровью и содержит сложно устроенный рецепторный аппарат, реагирующий на изменения газового состава артериальной крови: повышение напряжения СО2 (гиперкапнию), увеличение концентрации ионов Н+ (ацидоз) и меньше на снижение напряжения О2 (гипоксемию). Все три фактора, вызывая возбуждение каротидных хеморецепторов, усиливают активность центрального дыхательного механизма.
Механорецепторы дыхательной системы выполняют двоякую роль: во—первых, они участвуют в регуляции параметров дыхательного цикла — глубины вдоха и его длительности; во—вторых, эти рецепторы служат источником ряда рефлексов защитного характера — кашля, например. Рецепторы растяжения легких. эти Механорецепторы оказываются источником сигнализации о растяжении дыхательных путей, а следовательно, и легких. Ирритантные рецепторы.Эти рецепторы реагируют на резкие изменения объема легких, в частности на их спадение, которое вызывает рост инспираторной активности центрального механизма, прерывая таким путем выдох. Чувствительны они и к частицам пыли, скоплению слизи некоторым химическим раздражителям. Юкстаальвеолярные (юкстакапиллярные), или J—рецепторы. Эти рецепторы чувствительны к ряду биологически активных веществ (никотину, гистамину, простагландинам и др.), проникающим либо из воздухоносных путей, либо с кровью малого круга. Рецепторы верхних дыхательных путей. Они служат главным образом источником рефлексов защитного характера, возникающих при скоплении в воздухоносных путях слизи, попадании инородных тел и химических раздражителей (кашель, глотание, чихание).
На ритм дыхания могут рефлекторно оказывать влияние раздражения различных отделов организма, а поскольку водителем ритма является дыхательный центр, то и афферентные пути рефлекторной дуги должны замыкаться на дыхательном центре, а эфферентные пути идут от центра к исполнительным структурам дыхательной системы. При этом можно выделить ряд рецепторных зон, оказывающих наибольшее влияние на ритм дыхания. Среди таких ВИСЦЕРО-ПУЛЬМОНАЛЬНЫХ РЕФЛЕКСОВ наиболее известны:
1. рефлекс Геринга-Брейера — если легкие сильно раздуть, то вдох рефлекторно затормозится и начинается выдох. Напротив, если существенно уменьшить объем легких, то произойдет глубокий вдох. Дуга этого рефлекса начинается от рецепторов растяжения легочной паренхимы (подобные рецепторы обнаружение в трахее, бронхах и бронхиолах. Некоторые из этих рецепторов реагируют на степень растяжения легочной ткани, другие только при уменьшении или увеличении растяжения (независимо от степени). Афферентные волокна от рецепторов растяжения легких идут в составе блуждающих нервов, а эфферентное звено представлено двигательными нервами, идущими к дыхательной мускулатуре. Фи-зиологическое значение рефлекса Геринга-Брейера состоит в ограничении дыхательных экскурсий, благодаря рефлексу достигается соответствие глубины дыхания сиюминутным условиям функционирования организма, при котором работа дыхательной системы совершается более экономично. Кроме того, рефлекс препятствует перерастяжению легких.
Газообмен в легких.
Перенос О2 из альвеолярного газа в кровь и CO2 из крови в альвеолярный газ происходит исключительно путем диффузии. Ее движущей силой служат разности (градиенты) парциальных давлений (напряжений) O2 и СО2 по обе стороны аэрогематического барьера, образованного альвеолокапиллярной мембраной. Никакого механизма активного транспорта газов здесь нет. Кислород и углекислый газ диффундируют в растворенном состоянии: все воздухоносные пути увлажнены слоем слизи. Важное значение для облегчения диффузии 02 имеет сурфактантная выстилка альвеол, так как кислород растворяется в фосфолипидах, входящих в состав сурфактантов, гораздо лучше, чем в воде. В ходе диффузии через аэрогематический барьер молекулы растворенного газа должны преодолеть: слой сурфактанта, альвеолярный эпителий, две основные мембраны, эндотелий кровеносного капилляра. Ввиду того что в транспорте дыхательных газов существенную роль играют эритроциты, к этому списку добавляются слой плазмы и мембрана эритроцита. Диффузионная способность легких для кислорода очень велика. Это обусловлено огромным числом (сотни миллионов) альвеол и большой их газообменной поверхностью (у человека она составляет около 100 м2), а также малой толщиной (порядка 1 мкм) альвеолокапиллярной мембраны. Диффузионная способность легких у человека равна примерно 25 мл О2/мин в расчете на 1 мм рт. ст. градиента парциальных давлений кислорода. При учете того, что градиент Ро2 между притекающей к легким венозной кровью и альвеолярным газом обычно превышает 50 мм рт. ст., этого оказывается вполне достаточно, чтобы за время прохождения через легочный капилляр (около 0,8 с) напряжение кислорода в ней успело уравновеситься с альвеолярным Ро2. Несколько более низкое (на 3—6 мм рт. ст.) артериальное Роз по сравнению с альвеолярным объясняется проникновением венозной крови в артериальную через невентилируемые альвеолы, а также артериовенозные шунты. Лишь при ускорении легочного кровотока, например при тяжелой мышечной работе, когда время прохождения крови через капилляры альвеол может сокращаться до 0,3 с, наблюдается недонасыщение крови кислородом в легких, что, однако, возмещается увеличением минутного объема крови. Что касается диффузии СО2 из венозной крови в альвеолы, то даже сравнительно небольшого градиента Рсо2, (6—10 мм рт. ст.) здесь оказывается вполне достаточно, так как растворимость углекислого газа в 20—25 раз больше, чем у кислорода. Поэтому после прохождения крови через легочные капилляры Рсо2 в ней оказывается почти равным альвеолярному — обычно около 40 мм рт. ст. Недыхательные функции легких:
1.Метаболическая: 1)участие в обмене жиров для образования сурфактантов; 2)синтез простагландинов; 3)синтез тромбопластина и гепарина; 4)синтез протеолитических и липолитических ферментов.
2.Терморегуляторная. При снижении температуры в легких активируются экзотермические процессы (химическая теплопродукция), одновременно уменьшается капиллярный кровоток – физическая теплоотдача. 3.Барьерная. При вдыхании задерживаются механические частицы, которые потом удаляются ресничками мерцательного эпителия; Для крови: инактивация серотонина, брадикинина, простагландинов, адреналина, ацетилхолина; а также очистка крови от механических примесей. 4.Секреторная: 1)железы и секреторные клетки продуцируют 300-400 мл в сутки серозно-мукоидного секрета, который выполняет защитную функцию; 2)эндокринная функция: синтез простагландинов и других биологически активных веществ. 5.Экскреторная: 1)углекислый газ и другие летучие метаболиты (алкоголь)4 ацетоновый запах при диабетической коме; 2)удаление 500 мл воды в сутки. 6.Всасывательная. Хорошо всасывается эфир, хлороформ. Возможен ингаляционный путь введения паров и аэрозолей ряда лекарственных препаратов. 7.Очистительная: 1)секреторная активность и деятельность ресничного эпителия; 2)сосудисто-лимфатический путь.
Эндокринная функция
Выделяют четыре типа эндокринных клеток. В-клетки (Р) наиболее многочисленны в островках Лангерганса, они секретируют инсулин и локализуются в центре островков. Другие эндокринные клетки расположены по периферии островков вокруг В-клеток: А-клетки (а), секретирующие глюкагон; D-клетки, секретирующие соматостатин; F-клетки (РР), продуцирующие панкреатический полипептид. Соотношение А-, D- и F-клеток, расположенных по периферии, неодинаково в каждом ацинусе. В передней части железы больше встречается F-клеток, тогда как в задней части железы содержится больше А-клеток. Физиологическое значение такой региональной вариации до конца не изучено, но наличие клеток разных типов необходимо для паракринной регуляции функции островков с помощью одного гормона, соматостатина, отвечающего за высвобождение других "гормонов островков" — инсулина и глюкагона.
Экзокринная функция
Экзокринная секреция поджелудочной железы состоит в выделении пищеварительных ферментов и жидкости, богатой электролитами. Как уже упоминалось, ацинарные клетки отвечают за синтез и секрецию пищеварительных ферментов, а центроацинарные клетки и эпителиальные клетки протоков — за секрецию жидкости, которая транспортирует ферменты в двенадцатиперстную кишку, где они активируются. Каждый из этих процессов подробно обсуждается далее.
Секреция жидкости и электролитов
Гастроинтестинальный гормон секретин стимулирует секрецию воды, бикарбонатов, натрия, калия и хлоридов эпителием протоков посредством активации аденилатциклазы. Последующее образование циклического аденозинмонофосфата (цАМФ) стимулирует хлорные каналы на люминальной стороне эпителиальных клеток, после чего хлориды высвобождаются из цитоплазмы в просвет протоков. Механизм хлоридно-бикарбонатного обмена способствует обмену хлоридов на внутриклеточные бикарбонаты, и, таким образом, продуцируется богатая бикарбонатами жидкость, необходимая для транспорта пищеварительных ферментов. Холинергическая стимуляция может вызывать сходный эффект, независимо от действия секретина. Поэтому при холинергической стимуляции секрет железы богат бикарбонатами и беден хлоридами, а в состоянии покоя возникает противоположная ситуация. В покое жидкость протоков секретируется со скоростью около 0.2 мл/мин, тогда как в процессе стимуляции приближается к 4 мл/мин (рис.4). Всего поджелудочная железа секретирует в двенадцатиперстную кишку около 2.5 л жидкости каждые сутки.
Синтез и секреция ферментов
Ферменты поджелудочной железы образуются и хранятся в ацинарных клетках. В базальной части клетки расположены ядро и шероховатый эндоплазматический ретикулум, в котором происходит синтез белка. Ферменты из шероховатого эндоплазматического ретикулума поступают в комплекс Гольджи, находящийся между ядром и апикальной частью клетки, где они упаковываются в зимогенные гранулы и хранятся (рис.5) до момента стимуляции клетки. После стимуляции, например пищей, отмечается уменьшение гранул в размерах и их числа в клетках. Соответственно, результатом этого является увеличение секреции ферментов поджелудочной железы. Каждая зимогенная гранула содержит в различном соотношении все ферменты поджелудочной железы. Ферменты в гранулах обычно находятся в "уплотненном" состоянии и растворяются после их экскреции из клетки в щелочной секрет поджелудочной железы. Однако растворение ферментов происходит в неактивной (проферментной) форме, а переход в активную форму осуществляется не ранее, чем они попадут в двенадцатиперстную кишку. В этом заключается механизм защиты поджелудочной железы от самопереваривания. Кроме того, зона плотного соединение межклеточных контактов апикальных частей клеток поджелудочной железы препятствует рефлюксу пищеварительных ферментов из просвета протоков в межклеточное пространство и служит еще одним механизмом защиты поджелудочной железы. При попадании в двенадцатиперстную кишку кислоточувствительные ферменты поджелудочной железы защищены от кислотного расщепления секретом железы, имеющим щелочную среду, в котором они были транспортированы. Эти предшественники ферментов активируются посредством ферментативного гидролиза, о котором будет рассказано ниже.

Рис.4. Отношение содержания электролитов в секрете поджелудочной железы к скорости секреции

Рис.5. Строение ацинуса поджелудочной железы. Показано расположение зимогенных гранул но отношению к просвету протока
Поджелудочная железа секретирует большое количество пищеварительных ферментов (табл.1). Большинство из них предназначены для переваривания белков, жиров, углеводов, потребляемых с пищей. Для того, чтобы ферменты начали функционировать, они должны быть активированы в двенадцатиперстной кишке. Профермент трипсиноген подвергается ферментативному гидролизу с N-терминального фрагмента благодаря активности пептидазы (энтерокиназы), располагающейся на щеточной кайме энтероцитов тонкой кишки. Щеточная каемка тонкой кишки состоит из ворсинок, микроворсинок и крипт. В дополнение к механизмам, обеспечивающим абсорбцию питательных веществ, клетки щеточного барьера кишки выделяют различные вещества, способствующие пищеварению до момента абсорбции. Энтерокиназа является одним из таких веществ. Активированный трипсин, в свою очередь, катализирует активацию других проферментов, секретируемых поджелудочной железой. Поджелудочная железа также секретирует ингибитор трипсина. Этот пептид инактивирует трипсин, соединяясь с ним около его каталитического центра, и также является механизмом защиты поджелудочной железы. Механизм обратной связи регуляции процессов пищеварения с участием двенадцатиперстной кишки будет рассмотрен ниже.
Амилаза секретируется не только поджелудочной железой, но и слюнными железами. Несмотря на то, что две изоформы фермента имеют одинаковую энзиматическую активность, они могут быть разделены по своей электрофоретической подвижности. Амилаза участвует в расщеплении крахмала (углевод растительного происхождения) и гликогена (углевод животного происхождения). Амилаза слюнных желез начинает этот процесс и может фактически совершить переваривание значительной части крахмала до поступления его в тонкую кишку и контакта с панкреатической амилазой. Амилаза гидролизует а 1,4 гликозидные связи крахмала и гликогена, но не способна расщеплять al ,6 связи. Продуктами переваривания амилазой крахмала являются полисахариды — a-декстрины с a1,6 связями, al,6 связи гидролизуются другими кишечными ферментами после разрыва a1,4 связей. Таким образом, в процессе действия амилазы образуются вещества с a1,4 связями — мальтоза и мальтотриоза. Эти сахара разрушаются ферментами интестинальной щеточной каемки и обеспечивают вход глюкозы в эпителиальные клетки тонкой кишки.
Таблица 1. Пищеварительные ферменты поджелудочной железы
Поджелудочная железа — сложный эндокринный орган, который производит три основных гормона и как минимум еще пять ферментных соединений, отвечающих за функцию пищеварения в организме.
Структурно поджелудочная состоит из экзокринной части железы и эндокринной — в виде островков Лангерганса.
Островки Лангерганса состоят из нескольких типов клеток.
В составе этих образований выделяют:
- альфа-клетки — производят гормон глюкагон;
- бета-клетки — отвечают за секрецию инсулина;
- дельта-клетки — вырабатывают соматостатин.
Инсулин и глюкагон — это гормоны-антагонисты, которые определяют содержание сахара в организме. Регуляция эндокринной функции поджелудочной железы происходит с помощью глюкозы — основного субстрата, на который влияет панкреатическая железа. Повышение уровня глюкозы в крови способствует выбросу инсулина в кровь, если же уровень сахара снижен — то концентрация инсулина падает и наступает время активности глюкагона.
Инсулин по своей природе — это белковая структура, которая выполняет роль проводника глюкозы в клетку, этот гормон, взаимодействуя с клеточными рецепторами, позволяет сахару с высокой скоростью заходить в клетку. Поступления глюкозы в плазматическое пространство клетки возможно и без воздействия инсулина, например, с помощью активного транспорта, но этот процесс занимает намного больше времени, а сахар, прибывая в кровяном русле, начинает разрушать сосуды.
Основные гормоны поджелудочной железы
Глюкагон существует для обратного процесса — его призвание повышать уровень глюкозы в крови. Организм, а особенно головной мозг человека, очень чувствительны к недостатку глюкозы, поскольку она является основным энергетическим субстратом, поэтому глюкагон, можно сказать, гормон первой помощи.
 Его функция заключается в расщеплении гликогена — вещества содержащего запасы глюкозы, которое хранится в печении. Помимо этого, глюкагон является фактором стимуляции глюконеогенеза — процесса создания глюкозы в печени из другого субстрата.
Взглянув лишь на функцию этих двух гормонов, роль поджелудочной железы в обмене веществ сложно переоценить.
Эффекты соматостатина, дают понять, что поджелудочная необходима не только для пищеварения и регуляции сахара. Этот гормон влияет на работу других эндокринных желез. Соматостатин оказывает влияние на гипоталамус — центральный эндокринный орган. Воздействуя на него, соматостатин регулирует продукцию соматотропного гормона, тиреотропного гормона.
Также гормон дельта-клеток понижает секрецию глюкагона, инсулина, сератотнина и холецистокинина.
Другие гормоны и нарушение эндокринной функции поджелудочной
Эндокринная функция поджелудочной железы так же как экзокринная во многом застрагивает метаболизм в пищеварительной системе
Часть клеток поджелудочной железы продуцируют специфические гормоны, участвующие в регуляции процессов пищеварения.
Панкреатическая железа производит секрецию:
- Грелина — гормона голода, секреция которого возбуждает аппетит.
- Панкреатического полипептида — вещества,физиология воздействия которого, состоит в угнетении секреции поджелудочной и стимуляции выработки желудочного сока.
- Бомбезина — отвечает за насыщение пищей, а так же стимулирует выделение желудком пепсина.
- Липокаина — гормон, значение которого — мобилизация депонированного жира.
Таким образом, когда поджелудочная функционирует в нормальных условиях и выполняет все свои функции — риск развития ожирения и сахарного диабета сводится к минимуму. Если же она постоянно подвергается внешним атакам в виде алкогольного воздействия, влияния жирной пищи, могут возникать нарушения, связанные как с экзокринной дисфункцией, так и с эндокринной.
Панкреатит — воспаление тканей поджелудочной, затрагивает все ее части, поэтому проблемы начинают возникать на многих уровнях.
Кратко патологию эндокринной части панкреатической железы можно разделить на:
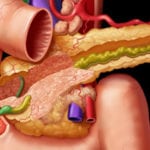 Самым распространенным врожденным нарушением считается инсулинозависимый сахарный диабет. Проблема заключается в отсутствии бета-клеток в островках Лангерганса, либо нарушении их секреторной функции. Такие дети вынуждены всю жизнь по 4-6 раз в день подкожно колоть себе инсулин, а также измерять уровень сахара глюкометром.
Приобретенные патологии возникают как реакция на повреждения поджелудочной железы — ее травмы, воздействие токсических веществ. Подобные нарушения могут протекать в виде хронического процесса -инсулиннезависимого сахарного диабета с незначительным нарушением секреции инсулина. Таким пациентом достаточно лишь соблюдать диету. Также поражение поджелудочной может протекать остро с развитием панкреонекроза, состояния угрожающего жизни, которое требует немедленного оперативного вмешательства.
Вся эндокринология занимает поиском путей предотвращения врожденных нарушений поджелудочной, а также методами защиты железы от негативного воздействия.
Лечение патологии поджелудочной
Инсулинозависимый сахарный диабет. Единственный способ лечения этого заболевания — это инсулинотерапия. Раньше он был животного происхождения, сейчас же выпускают либо очищенный человеческий инсулин, либо синтетический.
Данное вещество бывает в двух формах — короткого и пролонгированого действия. Быстродействующий инсулин применяется 4 раза в день за 15 минут до еды, это сильное вещество, которое помогает справиться с повышенной глюкозной нагрузкой.
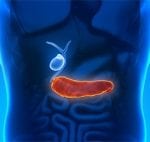 Пролонгированные формы инсулина колют два раза в день — утром и вечером, эта форма позволяет предотвратить колебание глюкозы крови на фоне стрессов, физических нагрузок и эмоций.
Существуют инсулиновые помпы, которые вшиваются в кожу, эти устройства программируются на определенную схему выделения инсулина. Позитивный момент их использования — отсутствие необходимости постоянных уколов, среди минусов — дороговизна и беспечность пациентов, которые перестают контролировать уровень сахара в крови, доверяя свою жизнь помпе.
Инсулиннезависимый сахарный диабет. Первоочередной задачей в терапии этого заболевания является коррекция способа жизни — это и диетическое питание, и снижение лишнего веса, и высокий уровень физических нагрузок.
При высоких показателях глюкозы — внутрь применяют оральные глюкозопонижающие препараты, такие как Глибенкламид. Биологический эффект лекарств этой группы заключается в стимулировании секреции инсулина бета-клетками островков Лангерганса, поскольку при этом типе диабета функция панкреатической железы еще сохранена, хоть и снижена.
Применяются заменители сахара — фруктоза, сорбит. Это позволяет больным не отказывать себе в сладком и контролировать уровень глюкозы и свое здоровье.
Опасные для жизни состояния
 Эндокринная роль поджелудочной, как уже говорилось, имеет высокое значение для нормального функционирование головного мозга.
От нормальной работы этого органа зависит общее состояние организма.
Помимо оказания воздействия на функционирование головного мозга поджелудочная железа оказывает влияние на большое количество биохимических реакций протекающих в клетках тканей.
Поэтому если ее функция нарушается, могут возникать опасные для жизни состояния, к которым относят:
- Гипогликемическая кома — наиболее тяжелое для мозговой деятельности состояние, возникает при передозировке инсулином, либо если пациент не поел после укола инсулина. Клинически проявляется слабостью, повышенной потливостью потерей сознания. Первая помощь дать человеку что-нибудь сладкое или напоить сладким чаем. Если состояние настолько тяжелое, что человек теряет сознание, внутривенно вводят раствор глюкозы в виде инъекции или капельницы;
- Кетоацидотическая кома — причиной является недостаточное количество инсулина, мозг поражается продуктами распада глюкозы. Заподозрить состояние можно, если человека тошнит, рвет, ощущается резкий запах ацетона изо рта. Помочь человеку можно с помощью введения инсулина;
- Гиперосмолярная кома — более тяжелая степень избытка глюкозы в крови. По причины повышенной концентрации сахара в кровеносном русле возрастает осмотическое давление жидкости, что приводит к тому, что вода перемещается внутрь клеток. Избыток внутриклеточной жидкости — это отек. Отек мозга конечно можно лечить назначением диуретиков, порой даже без остаточных явлений для больного. Но чаще всего, даже если человека в таком состоянии удается спасти, у него проявляются серьезные неврологические нарушения.
Поэтому важно, вовремя заподозрить патологическое состояние у пациентов, имеющих эндокринные нарушения поджелудочной. Вовремя съеденная конфета может спасти человеку жизнь.
Информация о функциях поджелудочной железы предоставлена в видео в этой статье.
Если вы нашли ошибку, пожалуйста, выделите фрагмент текста и нажмите Ctrl+Enter.
