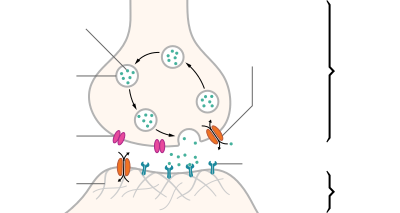
Нейромедиа́торы (нейротрансмиттеры, посредники, «медиаторы») — биологически активные химические вещества, посредством которых осуществляется передача электрохимического импульса от нервной клетки через синаптическое пространство между нейронами, а также, например, от нейронов к мышечной ткани или железистым клеткам. Нервный импульс, поступающий в пресинаптическое окончание, вызывает освобождение в синаптическую щель медиатора. Молекулы медиаторов реагируют со специфическими рецепторными белками клеточной мембраны, инициируя цепь биохимических реакций, вызывающих изменение трансмембранного тока ионов, что приводит к деполяризации мембраны и возникновению потенциала действия.
Содержание
Классификация [ править | править код ]
Традиционно нейромедиаторы относят к трём группам: аминокислоты, пептиды, моноамины (в том числе катехоламины).
Аминокислоты [ править | править код ]
- Гамма-аминомасляная кислота (ГАМК) — важнейший тормозной нейромедиатор центральной нервной системы человека и млекопитающих.
- Глицин — как нейромедиаторная аминокислота, проявляет двоякое действие. Глициновые рецепторы имеются во многих участках головного мозга и спинного мозга. Связываясь с рецепторами, глицин вызывает «тормозящее» воздействие на нейроны, уменьшает выделение из нейронов «возбуждающих» аминокислот, таких как глутамат, и повышает выделение ГАМК. Также глицин связывается со специфическими участками NMDA-рецепторов и, таким образом, способствует передаче сигнала от возбуждающих нейротрансмиттеров глутамата и аспартата. В спинном мозге глицин приводит к торможению мотонейронов, что позволяет использовать глицин в неврологической практике для устранения повышенного мышечного тонуса.
- Глутаминовая кислота (глутамат) — наиболее распространённый возбуждающий нейротрансмиттер в нервной системе позвоночных, в нейронах мозжечка и спинного мозга.
- Аспарагиновая кислота (аспарагинат) — возбуждающий нейромедиатор в нейронах коры головного мозга.
Катехоламины [ править | править код ]
- Адреналин — относят к возбуждающим нейромедиаторам, но его роль для синаптической передачи остаётся неясной, так же как не ясна она для нейромедиаторов VIP, бомбезин, брадикинин, вазопрессин, карнозин, нейротензин, соматостатин, холецистокинин.
- Норадреналин — считается одним из важнейших «медиаторов бодрствования». Норадренергические проекции участвуют в восходящей ретикулярной активирующей системе. Является медиатором как голубого пятна (лат. locus coeruleus) ствола мозга, так и окончаний симпатической нервной системы. Количество норадренергических нейронов в ЦНС невелико (несколько тысяч), но у них весьма широкое поле иннервации в головном мозге.
- Дофамин — является одним из химических факторов внутреннего подкрепления и служит важной частью «системы поощрения» мозга, поскольку вызывает чувства удовольствия и предвкушения (или ожидания) удовольствия (или удовлетворения), чем влияет на процессы мотивации и обучения.
Другие моноамины [ править | править код ]
- Серотонин — играет роль нейромедиатора в ЦНС. Серотонинергические нейроны группируются в стволе мозга: в варолиевом мосту и ядрах шва. От моста идут нисходящие проекции в спинной мозг, нейроны ядер шва дают восходящие проекции к мозжечку, лимбической системе, базальным ганглиям, коре. При этом нейроны дорсального и медиального ядер шва дают аксоны, различающиеся морфологически, электрофизиологически, мишенями иннервации и чувствительностью к некоторым агентам, например, метамфетамину.
- Гистамин — некоторые количества гистамина содержатся в ЦНС, где, как предполагают, он играет роль нейромедиатора (или нейромодулятора). Не исключено, что седативное действие некоторых липофильных антагонистов гистамина (проникающих через гематоэнцефалический барьер противогистаминных препаратов, например, димедрола) связано с их блокирующим влиянием на центральные гистаминовые рецепторы.
Другие представители [ править | править код ]
- Ацетилхолин — осуществляет нервно-мышечную передачу, а также основной нейромедиатор в парасимпатической нервной системе, единственное среди нейромедиаторов производное холина[1][2] .
- Анандамид — является нейротрансмиттером и нейрорегулятором, который играет роль в механизмах происхождения боли, депрессии, аппетита, проблем с памятью, ухудшение репродуктивних функций. Он также повышает устойчивость сердца к аритмогенному действию ишемии и реперфузии.
- АТФ (Аденозинтрифосфат) — роль как нейромедиатора не ясна.
- Вазоактивный интестинальный пептид (VIP) — роль как нейромедиатора не ясна.
- Таурин — играет роль нейромедиаторной аминокислоты, тормозящей синаптическую передачу, обладает противосудорожной активностью, оказывает также кардиотропное действие.
- Триптамин — предполагается, что триптамин играет роль нейромедиатора и нейротрансмиттера в головном мозге млекопитающих.
- Эндоканнабиноиды — в роли межклеточных сигнализаторов они похожи на известные трансмиттеры моноамины, такие как ацетилхолин и дофамин, эндоканнабиноиды отличаются во многих отношениях от них — например, они используют ретроградную сигнализацию (выделяются постсинаптической мембраной и воздействуют на пресинаптическую). Кроме того, эндоканнабиноиды являются липофильными молекулами, которые не растворяются в воде. Они не хранятся в пузырьках, а существуют в качестве неотъемлемой компоненты мембранного бислоя, который входит в состав клетки. Предположительно, они синтезируются «по требованию», а не хранятся для дальнейшего использования.
- N-ацетиласпартилглутамат (NAAG) — является третьим по распространённости нейромедиатором в нервной системе млекопитающих. Имеет все характерные свойства нейромедиаторов: концентрируется в нейронах и синаптических пузырьках, выделяется из аксональных окончаний под воздействием кальция после инициации потенциала действия, подлежит внеклеточному гидролизу пептидазами. Действует как агонист II группы метаботропных глутаматных рецепторов, в особенности рецептора mGluR3, и расщепляется в синаптической щели NAAG-пептидазами (GCPII, GCPIII) на исходные вещества: NAA и глутамат.
- Кроме того, нейромедиаторная (или нейромодуляторная) роль показана для некоторых производных жирных кислот (эйкозаноидов и арахидоновой кислоты), некоторых пуринов и пиримидинов (например, аденина), а также АТФ[3] .
Действие [ править | править код ]
Нейромедиаторы являются, как и гормоны, первичными посредниками, но их высвобождение и механизм действия в химических синапсах сильно отличается от такового у гормонов. В пресинаптической клетке везикулы, содержащие нейромедиатор, высвобождают его локально в очень маленький объём синаптической щели. Высвобожденный нейромедиатор затем диффундирует через щель и связывается с рецепторами на постсинаптической мембране. Диффузия является медленным процессом, но пересечение такой короткой дистанции, которая разделяет пре- и постсинаптические мембраны (0,1 мкм или меньше), происходит достаточно быстро и позволяет осуществлять быструю передачу сигнала между нейронами или между нейроном и мышцей. Затем нейромедиаторы инактивируются. Существуют два способа инактивации нейромедиаторов — дезаминирование и метилирование. [4]
Недостаток какого-либо из нейромедиаторов может вызывать разнообразные нарушения, например, различные виды депрессии.
Автор
Редактор
Шестая (и последняя) статья цикла о нейромедиаторах будет посвящена глутамату. Это вещество больше знакомо нам как усилитель вкуса в продуктах, но оно играет важную роль в нашей нервной системе. Глутамат — это самый распространенный возбуждающий нейротрансмиттер в нервной системе млекопитающих вообще и человека в частности.
Молекулы и связи
Глутамат (глутаминовая кислота) является одной из 20 основных аминокислот. Кроме участия в синтезе белков он может выполнять функцию нейромедиатора — вещества, которое передает сигнал от одной нервной клетки к другой в синаптической щели. При этом нужно учитывать, что глутамат, который есть в пище, не проникает через гематоэнцефалический барьер, то есть не оказывает прямого влияния на мозг. Глутамат образуется в клетках нашего тела из α-кетоглутарата путем трансаминирования. Аминогруппа переносится с аланина или аспартата, заменяя кетоновый радикал α-кетоглутарата (рис. 1). В итоге мы получаем глутамат и пируват или щавелевоуксусную кислоту (в зависимости от донора аминогруппы). Два последних вещества участвуют во многих важных процессах: щавелевоуксусная кислота, например, — это один из метаболитов в великом и ужасном цикле Кребса. Разрушение глутамата происходит при помощи фермента глутаматдегидрогеназы, и в ходе реакции образуются уже знакомый нам α-кетоглутарат и аммиак.
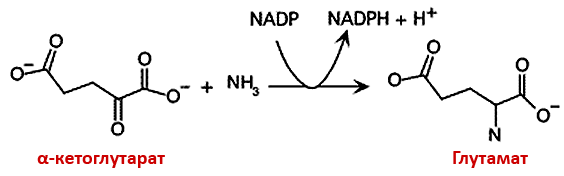
Рисунок 1. Синтез глутамата. Глутамат образуется из α-кетоглутарата путем замены кетогруппы на аминогруппу. При проведении реакции в клетках тратится никотинамидадениндинуклеотидфосфат (НАДФ, NADP). Рисунок с сайта lecturer.ukdw.ac.id.
У глутамата, как и у большинства других медиаторов, есть два типа рецепторов — ионотропные (которые открывают мембранную пору для ионов в ответ на присоединение лиганда) и метаботропные (которые при присоединении лиганда вызывают метаболические перестройки в клетке). Группа ионотропных рецепторов делится на три семейства: NMDA-рецепторы, AMPA-рецепторы и рецепторы каиновой кислоты. NMDA-рецепторы так называются, поскольку их селективным агонистом, веществом, избирательно стимулирующим эти рецепторы, является N-метил-D-аспартат (NMDA). В случае AMPA-рецепторов таким агонистом будет α-аминометилизоксазолпропионовая кислота, а каинатные рецепторы избирательно стимулируются каиновой кислотой. Это вещество содержится в красных водорослях и используется в нейробиологических исследованиях для моделирования эпилепсии и болезни Альцгеймера. В последнее время к ионотропным рецепторам стали также добавлять δ-рецепторы: они расположены на клетках Пуркинье в мозжечке млекопитающих. Стимуляция «классических» — NMDA-, AMPA- и каинатных — рецепторов приводит к тому, что калий начинает выходить из клетки, а кальций и натрий поступают в клетку. В ходе этих процессов в нейроне возникает возбуждение, и запускается потенциал действия. Метаботропные же рецепторы связаны с системой G-белков и участвуют в процессах нейропластичности [1]. Под нейропластичностью понимается способность нервных клеток образовывать новые связи друг другом или уничтожать их. Также в понятие нейропластичности включается способность синапсов изменять количество высвобождаемого нейромедиатора в зависимости от того, какие поведенческие акты и мыслительные процессы происходят в данный момент и с какой частотой.
Глутаматная система неспецифична: на глутаминовой кислоте «работает» почти весь мозг. Прочие, описанные в предыдущих статьях, нейромедиаторные системы имели более или менее узкую специфику — например, дофаминовая влияла на наши движения и мотивацию [2]. В случае с глутаматом такого не происходит — слишком широко и неизбирательно его влияние на процессы внутри мозга. Сложно выделить какую-то конкретную функцию, кроме возбуждающей. По этой причине приходится говорить о глутаматной системе как о совокупности большого количества связей в головном мозге. Такую совокупность называют коннектомом. Мозг человека содержит огромное количество нейронов, которые образуют между собой еще большее количество связей. Составить коннектом человека — задача, которая на сегодняшний день науке не под силу. Однако уже описан коннектом червя Caenorhabditis elegans [3] (рис. 2). Поклонники идеи коннектома утверждают, что в человеческих коннектомах записана наша идентичность: наши личность и память. По их мнению, в совокупности всех связей прячется наше «Я». Также «связисты» считают, что после описания всех нейронных связей мы сможем понять причину множества психических и неврологических расстройств, а значит и сможем их успешно лечить.
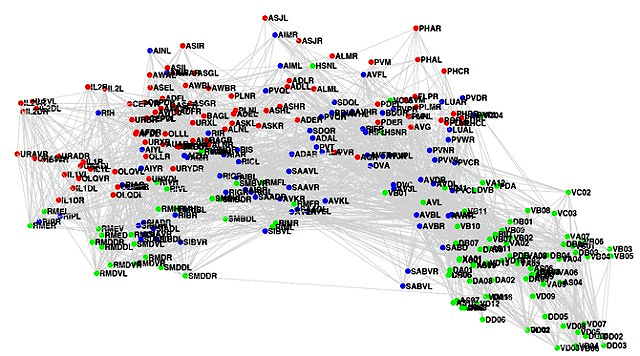
Рисунок 2. Коннектом нематоды Caenorhabditis elegans Каждый нейрон червя имеет свое название, а все связи между нейронами учтены и нанесены на схему. В итоге схема выходит запутаннее, чем карта токийского метро. Рисунок с сайта connectomethebook.com.
Как мне кажется, эта идея перспективна. В упрощённом виде связи между нейронами можно представить в виде проводов, сложных кабелей, соединяющих одни нейроны с другими. При поражении этих связей — искажении сигнала, обрыве проводов — может происходить нарушение слаженной работы головного мозга. Такие болезни, возникающие при сбое в нейронных каналах связи, называются коннектопатиями. Термин новый, но за ним скрываются уже известные ученым патологические процессы. Если вам хочется узнать о коннектомах больше, рекомендую прочесть книгу Себастьяна Сеунга «Коннектом. Как мозг делает нас тем, что мы есть» [4].
Перегрузка сети
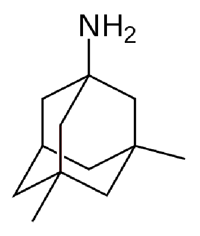
Рисунок 3. Структура мемантина. Мемантин является производным углеводорода адамантана (не путайте с адамантом). Рисунок из «Википедии».
В нормально работающем мозге сигналы от нейронов равномерно распределены по всем другим клеткам. Нейромедиаторы выделяются в необходимом количестве, и нет поврежденных клеток. Однако после инсульта (острое поражение) или при деменции (длительно текущий процесс) из нейронов в окружающее пространство начинает выделяться глутамат. Он стимулирует NMDA-рецепторы других нейронов, и в эти нейроны поступает кальций. Приток кальция запускает ряд патологических механизмов, что в итоге приводит к гибели нейрона. Процесс повреждения клеток за счет выделения большого количества эндогенного токсина (в данном случае — глутамата) называется эксайтотоксичностью.
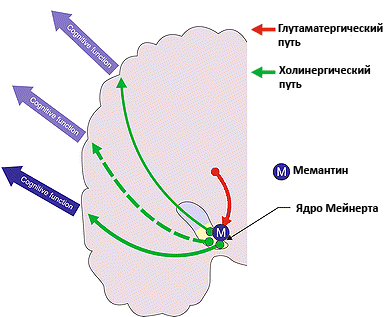
Рисунок 4. Действие мемантина при альцгеймеровской деменции. Мемантин снижает интенсивность возбуждающих сигналов, которые приходят от корковых нейронов на ядро Мейнерта. Ацетилхолиновые нейроны, составляющие эту структуру, регулируют внимание и ряд других когнитивных функций. Уменьшение избыточной активации ядра Мейнерта приводит к уменьшению симптомов деменции. Рисунок из [6].
Для того чтобы предотвратить развитие эксайтотоксичности или уменьшить ее влияние на течение болезни, можно назначить мемантин. Мемантин — очень красивая молекула-антагонист NMDA-рецепторов (рис. 3). Чаще всего этот препарат назначают при сосудистой деменции и деменции при болезни Альцгеймера. В норме NMDA-рецепторы заблокированы ионами магния, но при стимуляции глутаматом эти ионы высвобождаются из рецептора, и в клетку начинает проникать кальций. Мемантин блокирует рецептор и препятствует прохождению ионов кальция в нейрон — лекарство оказывает свое нейропротективное действие, снижая общий электрический «шум» в сигналах клетки. При альцгеймеровской деменции, помимо глутамат-опосредованных проблем, снижается уровень ацетилхолина — нейромедиатора, участвующего в таких процессах как память, обучение и внимание. В связи с этой особенностью болезни Альцгеймера психиатры и неврологи используют для лечения ингибиторы ацетилхолинэстеразы, фермента, который разрушает ацетилхолин в синаптической щели. Использование этой группы лекарств увеличивает содержание ацетилхолина в мозге и нормализует состояние пациента [5]. Специалисты рекомендуют совместное назначение мемантина и ингибиторов ацетилхолинэстеразы для более эффективной борьбы с деменцией при болезни Альцгеймера [6]. При совместном применении этих препаратов происходит воздействие сразу на два механизма развития болезни (рис. 4).
Деменция — это растянутое по времени поражение головного мозга, при котором гибель нейронов происходит медленно. А бывают заболевания, приводящие к быстрому и большому по объему поражению нервной ткани. Эксайтотоксичность — важный компонент повреждения нервных клеток при инсульте. По этой причине при нарушениях мозгового кровообращения применение мемантина может быть оправданно, однако исследования на эту тему только начинаются. В настоящее время есть работы, проведенные на мышах, где показано, что назначение мемантина в дозе 0,2 мг/кг в день уменьшает объем поражения мозга и улучшает прогноз инсульта [7]. Возможно, дальнейшие работы на эту тему позволят усовершенствовать терапию инсультов у людей.
Голоса в голове
Шизофрения — это еще одно заболевание, при котором воздействие на глутаматную систему мозга является новым и перспективным направлением терапии. В настоящее время главной причиной развития шизофрении считают нарушение дофаминовой передачи в мозге. Избыток дофамина в одних частях нервной системы приводит к бреду и галлюцинациям, а недостаток в других — к апатии, подавленности и отсутствию побуждений. Нейролептики — лекарства, блокирующие дофаминовые рецепторы — хорошо справляются с галлюцинациями и бредом, но с другой группой симптомов возникают проблемы. Ограниченность клинического эффекта нейролептиков указывает на то, что в развитие шизофрении могут быть вовлечены другие нейромедиаторные системы.
Если глутаматная система задействована при шизофрении, то можно проверить это даже на здоровых людях. Если здоровым испытуемым вводить препараты, блокирующие действие глутамата (кетамин, амфетамин), то у них развиваются симптомы шизофрении [8]. Введение кетамина больным шизофренией приводило к повторному возникновению психоза с повторением типичных для пациента симптомов, то есть кетамин вызывал не «просто психоз», а возвращал галлюцинации и бред, которые были раньше [9]. Это противоречие двух гипотез усложняет и без того непростую картину нейробиологических основ шизофрении. Психотическую симптоматику при введении кетамина можно объяснить его способностью влиять и на дофаминовые рецепторы. Другим объяснением может быть то, что дофаминовые и глутаматные нейроны способны оказывать влияние на полосатое тело. Эта часть мозга активно задействована в «производстве» галлюцинаций [10].
Самые частые галлюцинации у пациентов с шизофренией — слуховые: больной слышит «голоса» в своей голове. Голос может ругать, комментировать происходящее вокруг, в том числе и действия пациента. У одной из моих пациенток «голоса» читали вывески магазинов на улице, где она шла; другая услышала, как голос произнес: «Получишь пенсию, и пойдем в кафе». В настоящее время существует теория, объясняющая возникновение таких голосов. Представим, что пациент идет по улице. Он видит вывеску, а мозг автоматически «прочитывает» ее. При повышенной активности в височной доле, отвечающей за слуховое восприятие, у пациента возникают слуховые ощущения. Они могли бы подавляться за счет нормальной работы участков лобной коры, но этого не происходит из-за снижения их активности (рис. 5). Избыточная активность слуховой коры может быть вызвана гиперфункцией глутаматной (возбуждающей) системы или дефектом ГАМКергических структур, отвечающих за нормальное торможение в мозге человека. Вероятнее всего, недостаточная активность лобной доли в случае шизофрении также связана с нарушением нейромедиаторного баланса. Рассогласованность действий приводит к тому, что человек начинает слышать «голоса», которые явно соотносятся с окружающей обстановкой или передают его мысли. Очень часто свои мысли мы «проговариваем» в голове, что тоже может быть источником «голосов» в мозге человека, больного шизофренией [11].
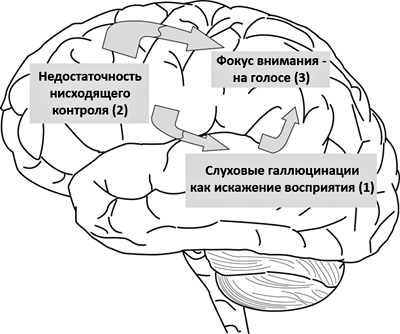
Рисунок 5. Возникновение слуховых галлюцинаций в мозге пациента с шизофренией. Первичное ощущение от автоматического «прочтения» вывесок или при возникновении мыслей, локализованное в височной коре (1), не подавляется лобной корой (2). Теменная кора (3) улавливает возникший паттерн активности в головном мозге и смещает на него фокус активности. В итоге человек начинает слышать «голос». Рисунок из [12].
На этом наше путешествие в мир нейромедиаторов закончено. Мы познакомились с мотивирующим дофамином, успокаивающей γ-аминомасляной кислотой и еще четырьмя героями нашего мозга. Интересуйтесь своим мозгом — потому что, как гласит название книги Дика Свааба, мы — это наш мозг.
7.4. МЕДИАТОРЫ И РЕЦЕПТОРЫ ЦНС
Медиаторами ЦНС являются многие химические вещества, разнородные в структурном отношении (в головном мозге к настоящему времени обнаружено около 30 биологически активных веществ). Вещество, из которого синтезируется медиатор (предшественник медиатора), попадает в нейрон или его окончание из крови или ликвора, в результате биохимических реакций под действием ферментов превращается в соответствующий медиатор, затем транспортируется в синапти-ческие везикулы. По химическому строению их можно разделить на несколько групп, главными из которых являются амины, аминокислоты, полипептиды. Достаточно широ-
ко распространенным медиатором является ацетилхолин.
А. Ацетилхолин встречается в коре большого мозга, в стволе, в спинном мозге, известен в основном как возбуждающий медиатор; в частности, является медиатором а-мо-тонейронов спинного мозга, иннервирующих скелетную мускулатуру. С помощью ацетил-холина а-мотонейроны по коллатералям своих аксонов передают возбуждающее влияние на тормозные клетки Реншоу. В ретикулярной формации ствола мозга, в гипоталамусе обнаружены М- и Н-холинорецепторы. В ЦНС установлено 7 типов Н-холинорецеп-торов. В ЦНС основными М-холинорецепто-рами являются Мг и М2-рецепторы. М,-хо-линорецепторы локализуются на нейронах гиппокампа, полосатого тела, коры большого мозга. М2-холинорецепторы локализованы на клетках мозжечка, ствола мозга. Н-холинорецепторы довольно плотно расположены в области гипоталамуса и покрышки. Эти рецепторы изучены достаточно хорошо, они выделены с помощью а-бунгаротоксина (основной компонент яда ленточного крайта) и а-нейротоксина, содержащегося в яде кобры. При взаимодействии ацетилхолина с Н-холи-норецепторным белком последний изменяет свою конформацию, в результате чего открывается ионный канал. При взаимодействии ацетилхолина с М-холинорецептором активация ионных каналов (К + , Са 2+ ) осуществляется с помощью вторых внутриклеточных посредников (цАМФ — циклический аденозинмонофосфат для М2-рецептора и ИФз/ДАГ — инозитол-3-фосфат (диацилгли-церол для М,-рецептора). Ацетилхолин активирует как возбуждающие, так и тормозные нейроны, что и определяет его эффект. Тормозное влияние ацетилхолин оказывает с помощью М-холинорецепторов в глубоких слоях коры большого мозга, в стволе мозга, хвостатом ядре.
Б. Амины (дофамин, норадреналин, серото-нин, гистамин). Большинство из них в значительных количествах содержится в нейронах ствола мозга, в меньших количествах выявляется в других отделах ЦНС.
Амины обеспечивают возникновение процессов возбуждения и торможения, например, в промежуточном мозге, в черной субстанции, в лимбической системе, в полосатом теле. Норадренергические нейроны сконцентрированы в основном в области голубого пятна (средний мозг), где их насчитывается всего несколько сотен. Но ответвления их аксонов встречаются по всей ЦНС.
Норадреналин является тормозным медиатором клеток Пуркинье мозжечка и периферических ганглиев; возбуждающим — в гипоталамусе, в ядрах эпиталамуса. В ретикулярной формации ствола мозга и гипоталамусе обнаружены а- и р-адренорецепторы.
Дофаминорецепторы подразделяют на Дг и Д2-подтипы. Д,-рецепторы локализуются на клетках полосатого тела, действуют посредством дофаминчувствительной аденилатцикла-зы, как и Д2-рецепторы. Д2-рецепторы обнаружены в гипофизе. При действии на них дофамина угнетаются синтез и секреция про-лактина, окситоцина, меланоцитстимулиру-ющего гормона, эндорфина. Д2-рецепторы найдены на нейронах полосатого тела, где их функция пока не определена.
Серотонин. С его помощью в нейронах ствола мозга передаются возбуждающие и тормозящие влияния, в коре мозга — тормозящие влияния. Имеется несколько типов серотонинорецепторов. Серотонин реализует свое влияние с помощью ионотропных и ме-таботропных рецепторов (цАМФ и ИФз/ДАГ). Серотонин содержится главным образом в структурах, имеющих отношение к регуляции вегетативных функций. Особенно много его в лимбической системе, ядрах шва. В нейронах названных структур выявлены ферменты, участвующие в синтезе серотони-на. Аксоны этих нейронов проходят в буль-боспинальных путях и оканчиваются на нейронах различных сегментов спинного мозга. Здесь они контактируют с клетками преган-глионарных симпатических нейронов и со вставочными нейронами желатинозной субстанции. Полагают, что часть этих так называемых симпатических нейронов (а может быть, и все) являются серотонинергическими нейронами вегетативной нервной системы. Их аксоны, согласно последним данным, идут к органам желудочно-кишечного тракта и стимулируют их сокращения.
Гнетами н. Довольно высокая его концентрация обнаружена в гипофизе и срединном возвышении гипоталамуса — именно здесь сконцентрировано основное количество гистаминергических нейронов. В остальных отделах ЦНС уровень гистамина очень низок. Медиаторная роль его изучена мало. Выделяют Н,-, Н2— и Н3-гистаминорецепто-ры. Н,-рецепторы имеются в гипоталамусе и участвуют в регуляции потребления пищи, терморегуляции, секреции пролактина и антидиуретического гормона. Н2-рецепторы обнаружены на глиальных клетках. Свое влияние гистамин реализует с помощью вторых посредников (цАМФ и ИФ3/ДАГ).
В. Аминокислоты. Кислые аминокислоты (глицин, гамма-аминомасляная кислота) являются тормозными медиаторами в синапсах ЦНС и действуют на соответствующие рецепторы (см. раздел 7.8), глицин — в спинном мозге, в стволе мозга, ГАМК — в коре большого мозга, мозжечке, стволе мозга, спинном мозге. Нейтральные аминокислоты (альфа-глутамат, альфа-аспартат) передают возбуждающие влияния и действуют на соответствующие возбуждающие рецепторы. Предполагается, что глутамат может быть медиатором аффе-рентов в спинном мозге. Рецепторы глутами-новой и аспарагиновой аминокислот имеются на клетках спинного мозга, мозжечка, та-ламуса, гиппокампа, коры большого мозга. Глутамат — основной возбуждающий медиатор ЦНС (75 % возбуждающих синапсов мозга). Рецепторы глутамата ионотропные (К + , Са 2+ , Na + ) и метаботропные (цАМФ и ИФз/ДАГ).
Г. Полипептиды также выполняют медиа-торную функцию в синапсах ЦНС. В частности, вещество П является медиатором нейронов, передающих сигналы боли. Особенно много этого полипептида содержится в дорсальных корешках спинного мозга. Это послужило основанием к предположению, что вещество П может быть медиатором чувствительных нервных клеток в области их переключения на вставочные нейроны. Вещество П в больших количествах содержится в гипо-таламической области. Различают два вида рецепторов вещества П: рецепторы типа SP-Р, расположенные на нейронах мозговой перегородки, и рецепторы типа SP-E, расположенные на нейронах коры большого мозга.
Энкефалины и эндорфины — медиаторы нейронов, блокирующих болевую импульсацию. Они реализуют свое влияние посредством соответствующих опиатных рецепторов, которые особенно плотно располагаются на клетках лимбической системы, много их также на клетках черной субстанции, ядрах промежуточного мозга и солитар-ного тракта, имеются они на клетках голубого пятна, спинного мозга. Их лигандами являются р-эндорфин, динорфин, лей- и ме-тэнкефалины. Различные опиатные рецепторы обозначаются буквами греческого алфавита: ц, к, су, 1, е. К-рецепторы взаимодействуют с динорфином и лей-энкефалином, избирательность действия других лигандов на опиатные рецепторы не доказана.
Ангиотензин участвует в передаче информации о потребности организма в воде, люлиберин — в половой актив-
ности. Связывание ангиотензина с рецепторами вызывает увеличение проницаемости клеточных мембран для Са 2+ . Эта реакция обусловлена не конформационными изменениями рецепторного белка, а процессами фосфорилирования мембранных белков вследствие активации аденилатциклазной системы и изменением синтеза простаглан-динов. Рецепторы к ангиотензину обнаружены на нейронах головного мозга, на клетках среднего и промежуточного мозга, коры большого мозга.
На нейронах головного мозга выявлены ВИП-рецепторы и рецепторы к соматостати-ну. Рецепторы к холецистокинину обнаружены на клетках коры большого мозга, хвостатого ядра, обонятельных луковиц. Действие холе-цистокинина на рецепторы повышает проницаемость мембран для Са 2+ посредством активации аденилатциклазной системы.
Д. АТФ также может выполнять роль классического медиатора, в частности в нейронах уздечки (возбуждающий эффект). В спинном мозге выделяется вместе с ГАМ К, но выполняет возбуждающую функцию. Весьма разнообразны рецепторы к АТФ, одни из них ионотропные, другие — метабо-тропные. АТФ и аденозин участвуют в формировании болевых ощущений, ограничивают перевозбуждение ЦНС.
Е. Химические вещества, циркулирующие в крови (некоторые гормоны, простагланди-ны), оказывающие модулирующее влияние на активность синапсов. Простагландины — ненасыщенные оксикарбоновые кислоты, высвобождаемые из клеток, влияют на многие звенья синаптического процесса, например на секрецию медиатора, работу адени-латциклаз. Они обладают высокой физиологической активностью, но быстро инактиви-руются и потому действуют локально.
Ж. Гипоталамические нейрогормоны. регулирующие функцию гипофиза, также выполняют медиаторную роль.
Физиологические эффекты действия некоторых медиаторов головного мозга. Н о р-адреналин регулирует настроение, эмоциональные реакции, обеспечивает поддержание бодрствования, участвует в механизмах формирования некоторых фаз сна, сновидений; дофамин — в формировании чувства удовольствия, регуляции эмоциональных реакций, поддержании бодрствования. Дофамин полосатого тела регулирует сложные мышечные движения. С е р о т о-н и н ускоряет процессы обучения, формирование болевых ощущений, сенсорное восприятие, засыпание; ангиотензин —
повышение АД, торможение синтеза катехол-аминов, стимулирует секрецию гормонов, информирует ЦНС об осмотическом давлении крови. Олигопептиды — медиаторы настроения, полового поведения; передачи ноцицептивного возбуждения от периферии к ЦНС, формирования болевых ощущений. Эндорфины, энкефалины, пептид, вызывающий дельт а-с о н, дают антиболевые реакции, повышение устойчивости к стрессу, сон. Простагландины вызывают повышение свертываемости крови; изменение тонуса гладких мышц, усиление физиологического эффекта медиаторов и гормонов. Мозгоспецифичные белки различных отделов головного мозга влияют на процессы обучения.
Согласно принципу Дейла, один нейрон синтезирует и использует один и тот же медиатор во всех разветвлениях своего аксона («один нейрон — один медиатор»). Кроме основного медиатора, как выяснилось, в окончаниях аксона могут выделяться и другие — сопутствующие медиаторы (комедиаторы), играющие модулирующую роль или более медленно действующие. Однако в спинном мозге установлено два быстродействующих типичных медиатора в одном тормозном нейроне — ГАМ К и глицин и даже один тормоз-ный (ГАМК.) и один возбуждающий (АТФ). Поэтому принцип Дейла в новой редакции сначала звучал так: «Один нейрон — один быстрый медиатор», а затем: «Один нейрон — один быстрый синаптический эффект».
Эффект действия медиатора зависит в основном от свойств ионных каналов постсинаптической мембраны. Это явление особенно ярко демонстрируется при сравнении эффектов отдельных медиаторов в ЦНС и в периферических синапсах организма. Ацетилхолин, например, в коре мозга при микроаппликациях на разные нейроны может вызывать возбуждение и торможение, в синапсах сердца — торможение, в синапсах гладкой мускулатуры желудочно-кишечного тракта — возбуждение. Катехоламины стимулируют сердечную деятельность, но тормозят сокращения желудка и кишечника.
